
Hodgkin-Huxley模型
《Hodgkin-Huxley模型》(Hodgkin-Huxley model,简称HH模型)是神经科学和生物物理学中最具奠基性的定量模型之一。它由英国生理学家Alan Lloyd Hodgkin与Andrew Fielding Huxley于1952年在一系列经典论文中提出,用以解释神经元轴突如何产生和传导动作电位。该模型不仅成功重现了乌贼巨轴突的电生理行为,还首次将兴奋性膜的离子通透性变化与跨膜电位变化耦合在一起,从而开启了现代电生理学与计算神经科学的时代。1963年,Hodgkin与Huxley因这一工作与John Eccles共同获得诺贝尔生理学或医学奖。
历史背景与实验基础编辑本段
20世纪40年代,Hodgkin和Huxley选择乌贼巨轴突作为实验材料,因为其直径可达0.5–1 mm,足以将金属丝插入轴突内部直接测量跨膜电位。他们利用电压钳技术将膜电位固定在设定值,同时测量跨膜电流。实验发现了两个关键现象:第一,去极化首先引发一个快速的内向电流,随后是一个较慢的外向电流;第二,通过改变细胞外Na+和K+浓度,可以确定快速内向电流由Na+携带,慢速外向电流由K+携带。这些观察直接导致了离子通道电导概念的诞生。
核心方程与门控变量编辑本段
HH模型将细胞膜视为一个电容与若干可变电导并联的电路。其核心电流平衡方程为:
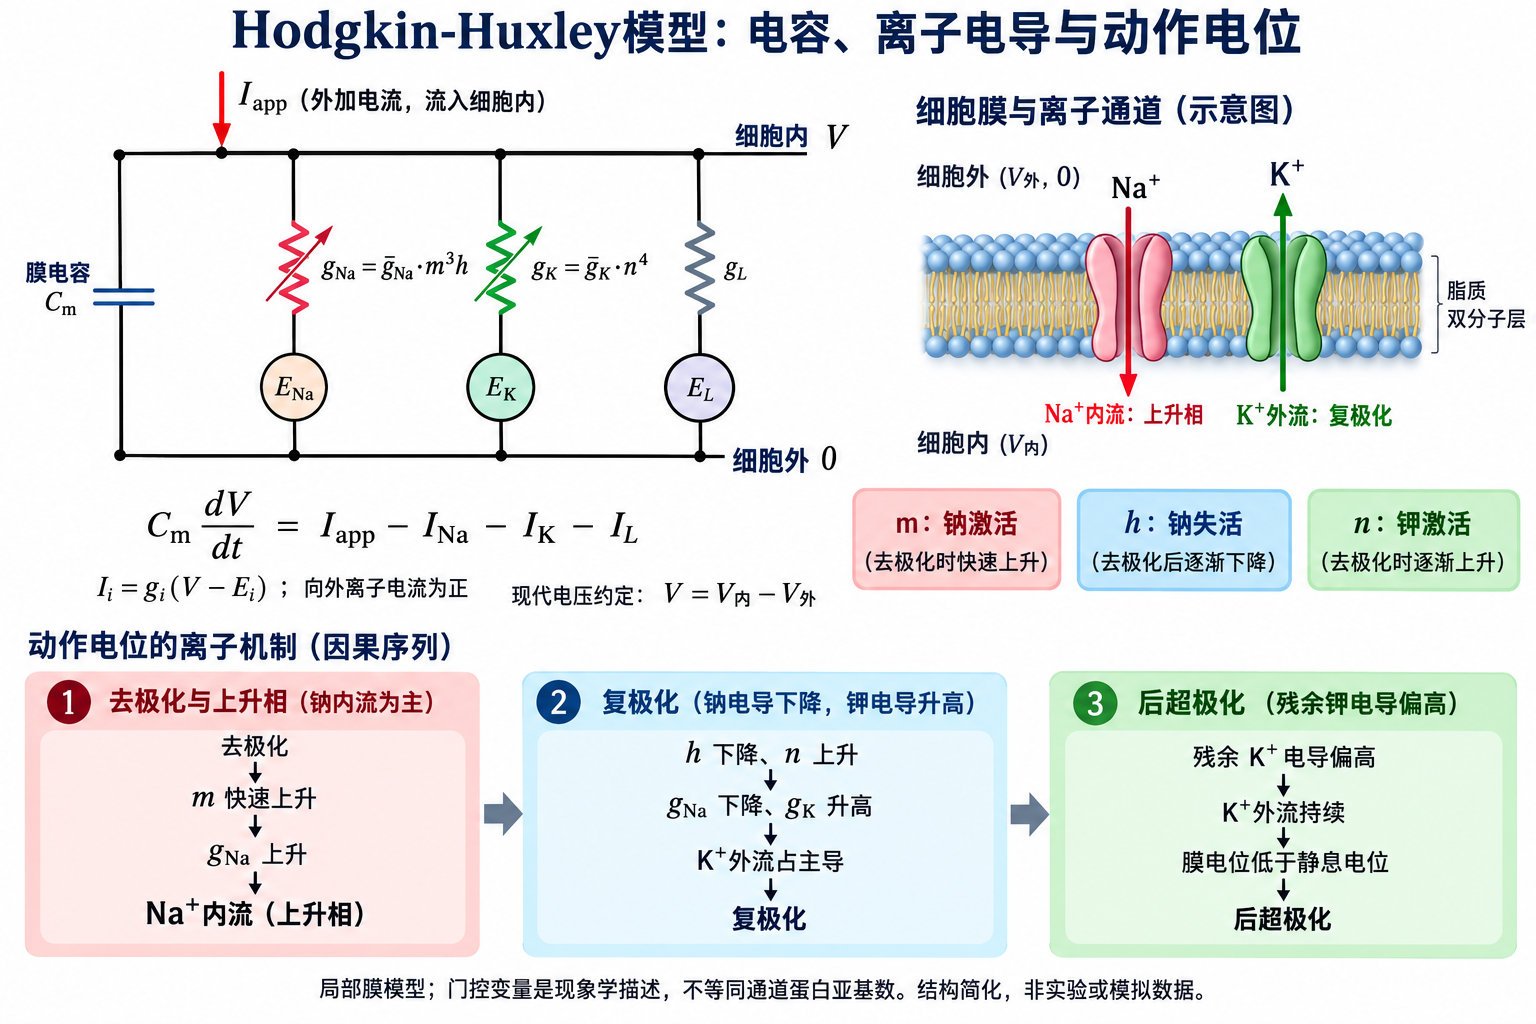 Hodgkin-Huxley局部膜模型将膜电容与钠、钾及漏电流并联:gNa=ḡNa·m³h,gK=ḡK·n⁴。m为钠激活、h为钠失活、n为钾激活变量;上升相主要与钠内流有关,复极化及后超极化与钠电导下降、钾电导升高及其延迟恢复有关。图采用V=V内−V外及向外离子电流为正的现代符号约定;门控变量为现象学描述,不直接对应蛋白亚基数。依据Hodgkin与Huxley(1952,doi:10.1113/jphysiol.1952.sp004764)及NEURON官方hh实现。
Cm dV/dt = Iext − INa − IK − IL
其中Cm为膜电容,V为膜电位,Iext为外加刺激电流。各离子电流遵循欧姆定律形式:INa = gNa(V − ENa),IK = gK(V − EK),IL = gL(V − EL)。关键创新在于,钠和钾电导并非常数,而是由电压依赖的门控变量控制:gNa = ḡNa m3h,gK = ḡK n4。其中m为钠通道激活变量,h为钠通道失活变量,n为钾通道激活变量。每个门控变量满足一阶动力学:dx/dt = αx(V)(1−x) − βx(V)x,x ∈ {m, h, n}。α和β是电压的函数,由电压钳实验数据拟合得到。这些方程共同构成一个四维非线性常微分方程组,能够产生动作电位的全部特征。
动作电位的产生机制编辑本段
在静息状态下,m较小、h较大、n较小,膜主要对K+通透,静息电位接近EK。当膜去极化达到阈值时,m迅速增大,钠电导急剧上升,Na+内流进一步去极化,形成正反馈,产生动作电位的上升相。随后h逐渐减小,钠通道失活,同时n增大,钾电导上升,K+外流使膜复极化,形成下降相。由于h的恢复慢于n的关闭,膜在短时间内处于超极化状态,形成后电位与不应期。HH模型不仅定性解释了这些现象,还定量再现了动作电位的波形、阈值、传播速度以及温度依赖性。
数学性质与计算意义编辑本段
从动力系统角度看,HH模型是一个具有快慢时间尺度的四维系统,其动作电位对应于从静息平衡点出发的大幅极限环 excursion。模型表现出阈值行为、全或无特性、不应期以及周期激发等非线性现象。在计算神经科学中,HH模型是构建更复杂神经元模型的基础。例如,Morris-Lecar模型和Hindmarsh-Rose模型均为其简化版本;而现代多 compartment 模型和网络模型通常以HH方程作为基本单元。数值求解HH方程需要处理刚性问题,常采用隐式方法或算子分裂法。
分子生物学验证与扩展编辑本段
HH模型提出时,离子通道尚属假说。20世纪80年代,Erwin Neher与Bert Sakmann发明膜片钳技术,直接记录到单通道电流,随后分子克隆鉴定出钠、钾通道的基因与蛋白结构,为HH模型提供了坚实的分子基础。现代研究进一步揭示了通道的门控电荷、选择性滤器、失活门与辅助亚基等细节。HH模型也被扩展至心肌细胞、视网膜、突触传递、树突整合以及病理状态如癫痫、心律失常和神经退行性疾病的研究中。
局限性与现代发展编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。