
互利共生
概念界定与基本特征编辑本段
互利共生(Mutualism)指两个或多个物种在长期相互作用中,双方均获得适合度收益的种间关系。其核心判据在于:互动对每一方的净效应均为正,即若去除该互动,双方的存活、生长或繁殖表现均会下降。互利共生与偏利共生(commensalism)、寄生(parasitism)和竞争(competition)共同构成种间相互作用谱系,其边界并非绝对,常随环境条件与个体发育阶段而发生连续变化。
从种群动力学角度看,互利共生可用Lotka-Volterra型模型描述:每个物种的种群增长率因另一物种的存在而提高。但互利共生并不总是稳定:若收益随密度线性增加而无饱和机制,模型将预测种群无限增长,导致“失控式”互利。因此,自然界中的稳定互利共生通常依赖收益饱和、空间结构、伙伴选择或惩罚机制等非线性过程。
主要类型与经典案例编辑本段
互利共生可按资源交换类型划分为若干功能类别。
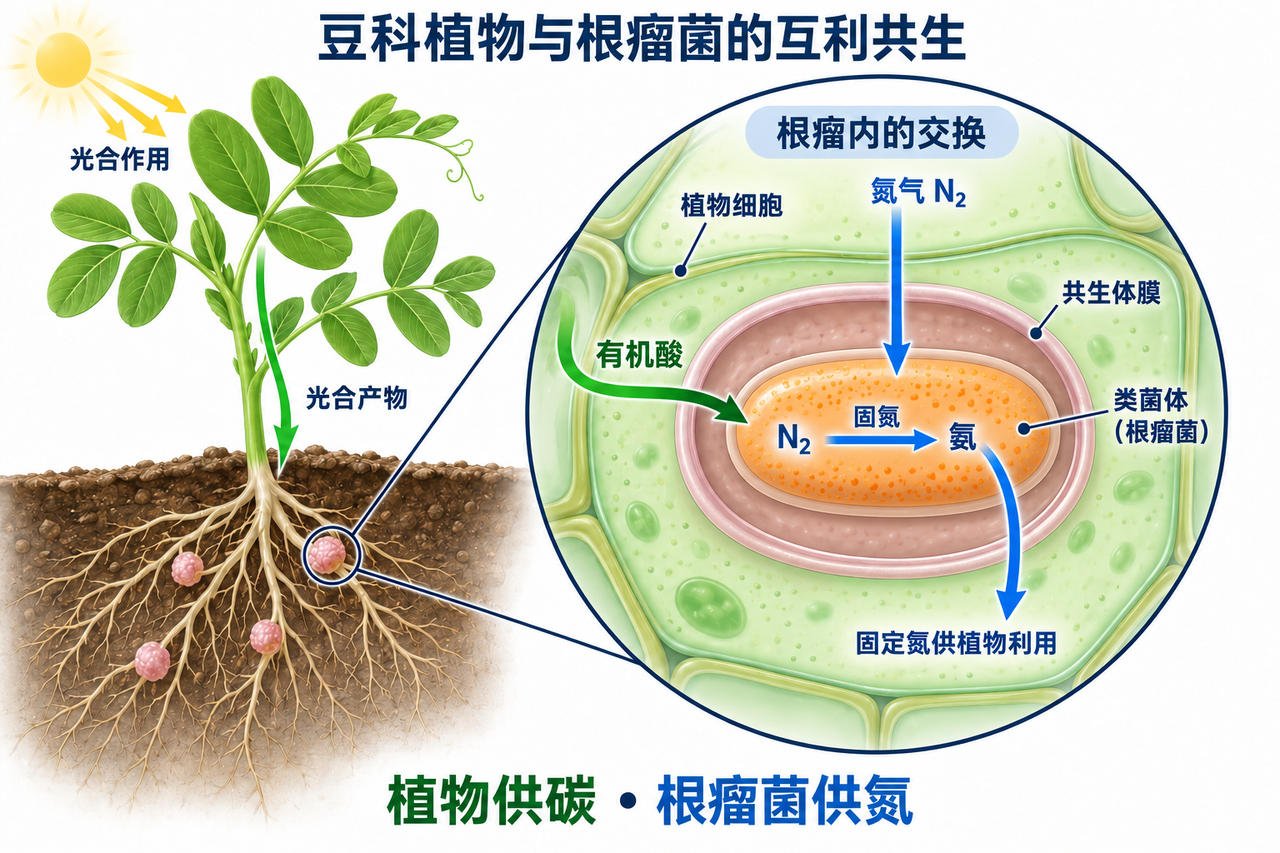 豆科植物与根瘤菌的碳氮交换:植物向类菌体提供有机酸,类菌体将氮气还原为氨,并向植物提供固定氮。
营养型互利共生:豆科植物与根瘤菌的共生是最典型的代表。根瘤菌将大气中的氮气固定为铵态氮供植物利用,植物则提供光合产物和微氧环境。菌根真菌与绝大多数陆生植物的共生同样属于此类,真菌菌丝扩大植物根系对磷、氮和水分的吸收面积,植物向真菌输送碳水化合物。地衣则是真菌与藻类或蓝细菌形成的复合体,是真菌与光合生物之间的稳定互利共生。
传粉与传播型互利共生:开花植物与传粉昆虫、鸟类、蝙蝠之间的互惠关系是陆地生态系统中最普遍的营养–繁殖交换形式。植物以花蜜和花粉作为报酬,动物则完成异花授粉。类似地,肉质果实与食果动物之间的传播互利共生,使种子得以远离母株扩散。
清洁型互利共生:在珊瑚礁生态系统中,清洁鱼(如裂唇鱼)和清洁虾为大型鱼类清除体表寄生虫和坏死组织,清洁者获得食物,客户鱼获得健康收益。这类互动常形成稳定的“清洁站”,并涉及复杂的信号识别与作弊惩罚。
防御型互利共生:蚂蚁与金合欢属植物的关系是经典案例。植物提供空心刺和富含营养的贝尔特体作为蚂蚁的巢穴和食物,蚂蚁则攻击食草动物并清除竞争植物。类似地,蚜虫与蚂蚁、某些植物与寄生蜂之间的互惠防御关系也广泛存在。
细胞内互利共生:珊瑚与虫黄藻(Symbiodinium)的共生是海洋生态系统的基础。虫黄藻通过光合作用为珊瑚提供高达90%的能量需求,珊瑚则为藻类提供庇护和氮磷营养。这一共生关系的崩溃是珊瑚白化的直接原因。此外,深海热液喷口处管虫与化能合成细菌的共生、蚜虫与布赫纳氏菌的共生,均属于细胞内互利共生,其中共生体基因组常发生显著缩减,成为研究共生起源与细胞器进化的模式系统。
进化起源与维持机制编辑本段
互利共生的进化起源是进化生物学的核心问题之一。传统观点认为,互利共生多由对抗性关系演化而来:寄生或捕食关系在特定条件下可因收益结构改变而转为互惠。例如,某些寄生真菌在特定宿主中可表现为互利共生,说明共生关系的性质具有条件依赖性。
维持互利共生的关键在于抑制作弊者(cheater)。作弊者接受伙伴提供的收益却不给予相应回报,若不受惩罚,将在种群中扩散并导致共生崩溃。自然界演化出多种稳定机制:伙伴选择(宿主偏好高质量共生体)、制裁与惩罚(如豆科植物对固氮能力低的根瘤菌减少氧供应)、垂直传播(共生体通过母系传递,使其命运与宿主高度绑定),以及空间结构(有限扩散使合作者与作弊者局部聚集,促进合作者互惠)。
博弈论与协同进化模型为理解这些机制提供了理论框架。以重复囚徒困境为基础的合作演化理论表明,当互动重复进行、伙伴可识别且未来收益足够重要时,合作策略可稳定存在。
生态功能与网络结构编辑本段
互利共生是生态系统功能的核心驱动力之一。菌根网络连接不同植物个体,形成“木维网”(wood wide web),影响森林群落中碳、氮和磷的分配。传粉网络维持着被子植物的繁殖成功,是全球粮食安全和陆地生物多样性的基础。珊瑚–虫黄藻共生支撑着珊瑚礁生态系统,为数百万物种提供栖息地。
从网络科学视角看,互利共生网络具有嵌套性(nestedness)和模块性(modularity)等结构特征。嵌套结构意味着专性伙伴倾向于与泛性伙伴互动,增加了网络的稳健性;模块结构则限制了扰动在网络中的传播。这些拓扑特征与互惠网络的稳定性、抗灭绝能力密切相关。
研究方法与技术进展编辑本段
现代互利共生研究融合了多种技术手段。稳定同位素分析(如δ15N、δ13C)可追踪营养来源和共生体贡献。基因组学与宏基因组学揭示了共生体基因组的缩减、水平基因转移和宿主–共生体代谢互补。转录组学和代谢组学可实时解析共生界面的信号交流。实验进化与合成生物学方法,如构建人工互利共生系统,正被用于检验合作演化的基本理论预测。
全球变化与保护意义编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。