
锌指蛋白
一、发现简史与基本概念编辑本段
锌指蛋白的发现可追溯至1985年,Miller、McLachlan和Klug在研究非洲爪蟾(Xenopus laevis)转录因子TFIIIA时,首次鉴定出一种依赖锌离子稳定的重复结构单元。该结构因形似手指而得名“锌指”(zinc finger)。TFIIIA包含9个串联重复的锌指结构域,每个约30个氨基酸,通过两个半胱氨酸(Cys)和两个组氨酸(His)配位一个Zn2+离子,形成C2H2型锌指。这一发现开创了蛋白质结构生物学的新篇章,随后大量锌指蛋白在酵母、果蝇、植物和哺乳动物中被鉴定。
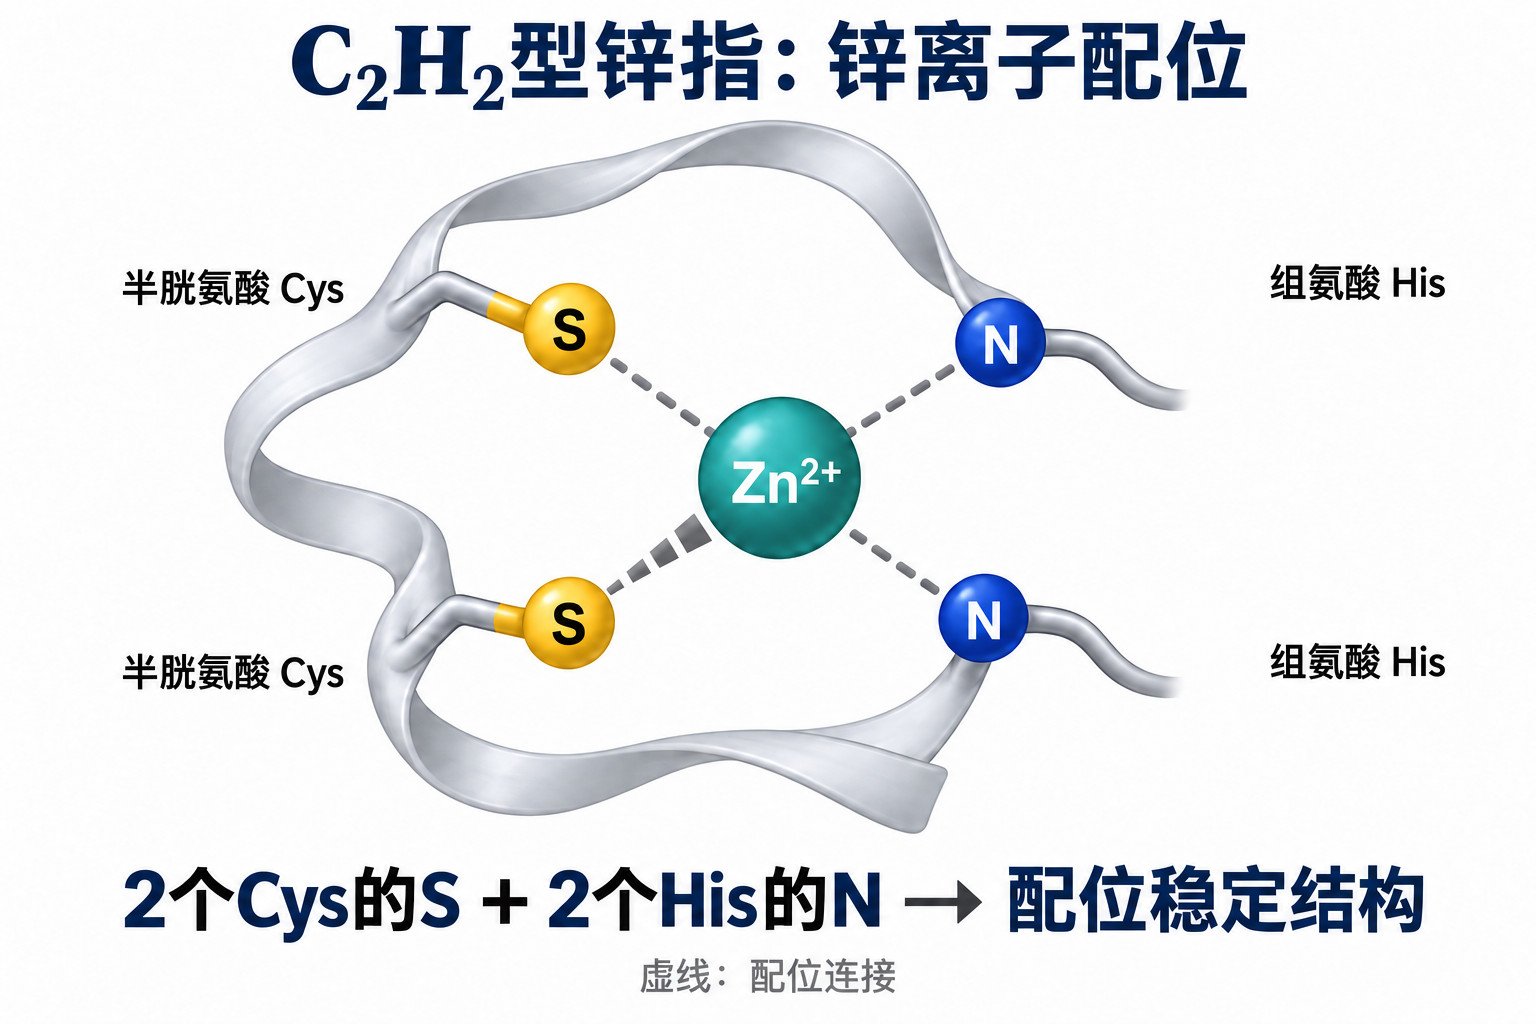 C₂H₂型锌指中,两个半胱氨酸的硫原子与两个组氨酸的氮原子共同配位一个Zn²⁺。灰色虚线表示配位连接,锌离子帮助稳定蛋白质结构。
锌指蛋白并非单一蛋白质,而是一个庞大的超家族。根据锌指结构域中配位残基的组成和排列方式,可分为C2H2、C4、C6、RING finger、PHD finger、FYVE finger等多种类型。其中C2H2型(又称Cys2His2型)是真核生物中最丰富的一类,人类基因组中编码约700余个C2H2型锌指蛋白,约占全部转录因子的三分之一。锌指结构域不仅介导序列特异性DNA结合,还参与RNA结合、蛋白质-蛋白质相互作用以及染色质修饰等过程。
二、结构特征与配位化学编辑本段
经典的C2H2型锌指结构域具有一段保守序列:X2-Cys-X2-4-Cys-X12-His-X3-5-His,其中X代表任意氨基酸。该结构域折叠为ββα构象:两个反向平行的β链和一个α螺旋通过锌离子的配位作用紧密连接。锌离子与四个配位原子(两个半胱氨酸的硫原子和两个组氨酸的氮原子)形成近似四面体配位,使结构域获得热力学稳定性。α螺旋中的关键残基(位置-1、+2、+3、+6)直接与DNA大沟中的碱基发生特异性接触,从而决定锌指蛋白的DNA结合特异性。串联的锌指结构域之间通过保守的TGEKP连接序列保持间距,使每个锌指能够独立识别相邻的3个碱基对,从而实现长序列的特异性识别。
除C2H2型外,C4型锌指(如核受体中的锌指)通过四个半胱氨酸配位锌离子,形成两个α螺旋结构,主要介导蛋白质-蛋白质相互作用和DNA结合。RING finger结构域(C3HC4型)参与泛素连接酶复合物的组装,而PHD finger则常见于染色质重塑复合物中,识别组蛋白修饰。这些结构变体极大地扩展了锌指蛋白的功能多样性。
三、生物学功能与作用机制编辑本段
锌指蛋白的首要功能是作为序列特异性转录因子,调控基因表达。典型的C2H2型锌指蛋白(如SP1、Egr1、WT1)通过其锌指结构域识别靶基因启动子或增强子中的特定DNA序列,招募共激活因子或共抑制因子,进而激活或抑制转录。部分锌指蛋白还含有KRAB结构域(Krüppel相关盒),通过招募KAP1和组蛋白甲基转移酶SETDB1,介导异染色质形成和基因沉默。此外,锌指蛋白在RNA代谢中发挥重要作用:例如,TFIIIA除结合DNA外还能结合5S rRNA;ZFP36家族蛋白通过其锌指结构域识别富含AU的mRNA元件,促进mRNA降解。
锌指蛋白还参与染色质重塑和表观遗传调控。例如,CTCF蛋白含有11个锌指结构域,是基因组三维结构组织的关键因子,参与拓扑关联结构域(TAD)边界的形成。PRDM家族蛋白(如PRDM9)通过锌指结构域识别特定DNA序列,在减数分裂重组热点定位中发挥作用。此外,锌指蛋白在发育调控、细胞分化、免疫应答和细胞周期控制中均扮演核心角色。锌指蛋白功能异常与多种疾病密切相关:WT1突变导致Wilms瘤和肾脏发育异常;ZIC2突变引起前脑无裂畸形;ZNF804A被列为精神分裂症的风险基因。
四、人工锌指技术与应用编辑本段
锌指结构域的模块化特性使其成为蛋白质工程的重要靶点。通过改变α螺旋中的关键残基,可以重新编程锌指蛋白的DNA结合特异性。将人工设计的锌指结构域与核酸酶FokI的催化结构域融合,可构建锌指核酸酶(ZFN),实现对特定基因组位点的定向切割。ZFN技术是第一代基因编辑工具,已成功应用于CCR5基因敲除治疗HIV、血友病和镰状细胞贫血等疾病的临床研究。尽管CRISPR-Cas9技术因其简便性而后来居上,但ZFN凭借其高特异性和较小的脱靶效应,在特定治疗场景中仍具优势。此外,锌指蛋白还被改造为人工转录因子(ZFP-TF),用于激活或抑制内源基因表达,以及构建锌指蛋白介导的表观遗传编辑工具。
五、研究展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。