
完全水生两栖动物
定义与类群范围编辑本段
完全水生两栖动物(Fully Aquatic Amphibians)并非一个严格的分类学单元,而是对两栖纲中那些在个体发育的整个或绝大部分阶段均依赖水环境完成摄食、繁殖、呼吸和运动的类群的统称。两栖动物传统上被视为水陆之间的过渡类群,但多个独立演化支系发生了“次生水生”适应,即祖先已具备一定的陆生能力后,又重新回到水中并失去陆生特征。典型代表包括蝾螈亚目的鳗螈科(Sirenidae)、两栖鲵科(Amphiumidae)和洞螈科(Proteidae),以及无尾目的负子蟾科(Pipidae)和某些蛙类。这些类群在分类上分属不同目,但趋同演化出鳗形身体、四肢退化、皮肤呼吸强化等特征。
形态与解剖适应编辑本段
完全水生两栖动物最显著的形态特征为体呈鳗形或鱼雷形,尾鳍发达,四肢缩小或仅存痕迹。例如,鳗螈体长可达90厘米,无后肢,前肢具四指,外鳃终身保留;两栖鲵体细长,四肢极小,几乎不用于运动,主要依靠躯干波动游泳。洞螈(Proteus anguinus)前肢具三指、后肢二指,皮肤苍白,眼睛退化 buried 于皮下,但保留了光敏感性。负子蟾(Pipa pipa)体扁平,后肢具全蹼,趾端具星状触须,适应于底层匍匐生活。骨骼系统多呈软骨化或骨化程度降低,以适应浮力需求;肋骨短小或缺失,与蛇形运动相适应。皮肤腺体丰富,黏液分泌旺盛,可减少水中摩擦并参与气体交换。侧线系统在鳗螈和洞螈幼体及成体中均存在,为水中感知水流和振动的重要感觉器官,这在陆生两栖类中通常于变态后消失。
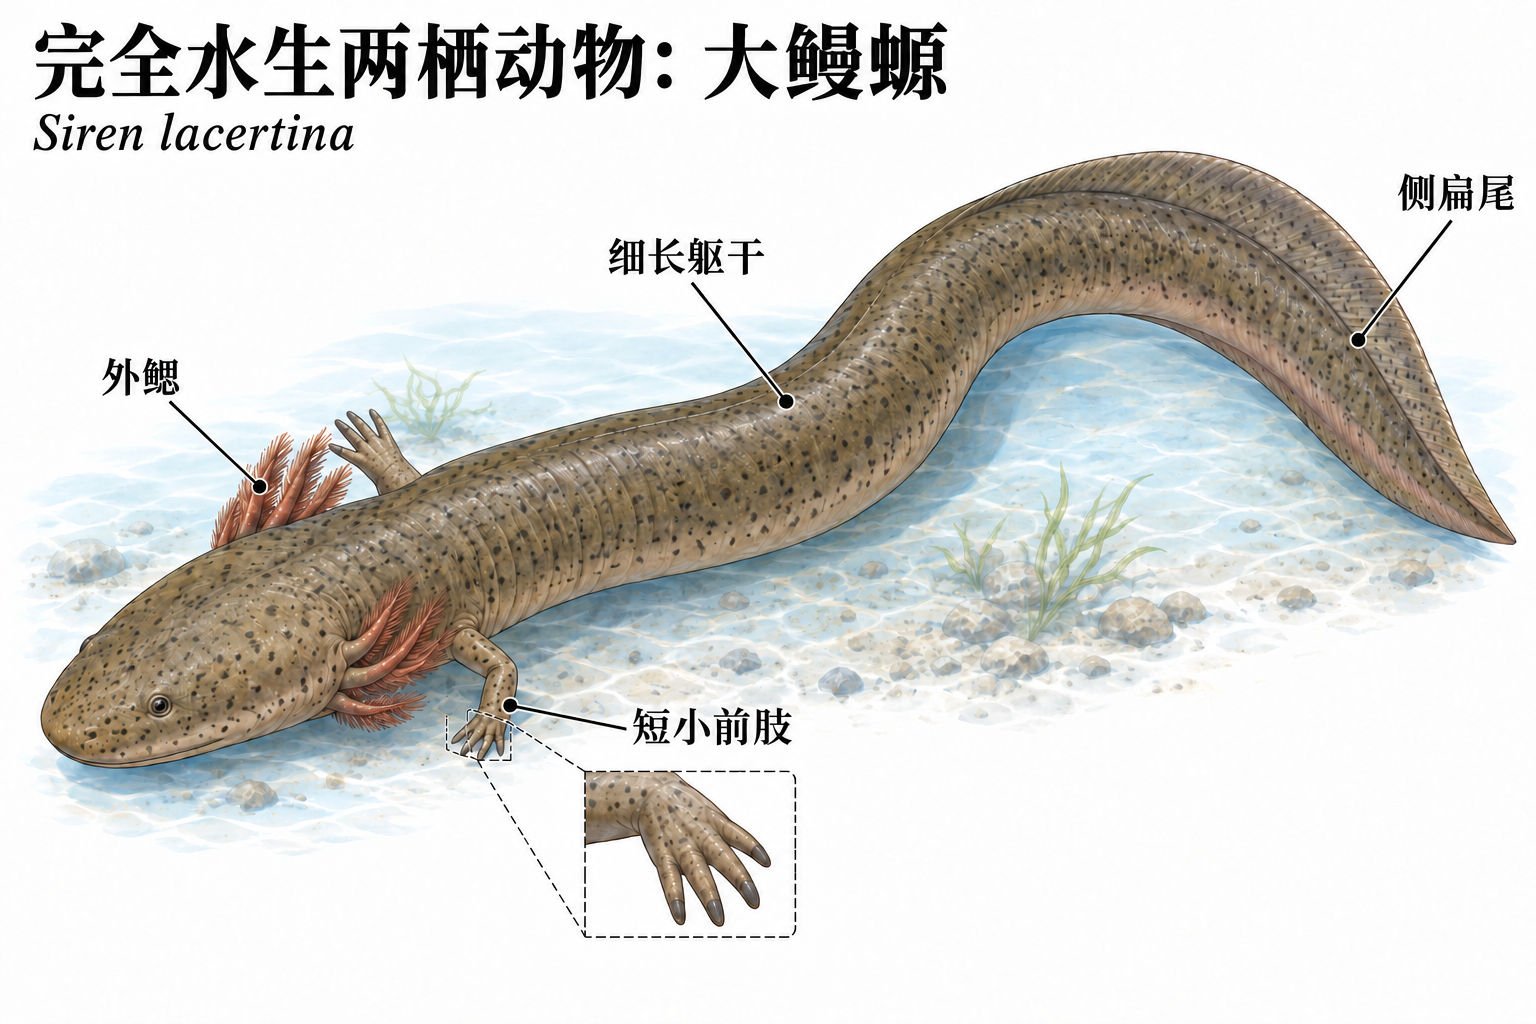 大鳗螈终身保留外鳃,具有一对四指的短小前肢,没有后肢。细长躯干与侧扁尾构成其水中运动的身体形态,引线分别标出外鳃、前肢、躯干和尾。
呼吸与循环系统编辑本段
完全水生两栖动物的呼吸策略多样,但共同表现为肺功能减弱、皮肤和口腔黏膜呼吸增强。鳗螈的肺高度退化,主要依靠皮肤和外鳃进行气体交换;两栖鲵肺较长,但皮肤呼吸贡献显著;洞螈肺小,皮肤薄且毛细血管丰富,是其氧摄取的主要途径。负子蟾的肺仍发达,但皮肤呼吸亦占一定比例。循环系统方面,多数种类动脉圆锥和半月瓣结构简化,部分物种的体动脉和肺皮动脉干分离不完全,血液分流调控能力较弱。此外,部分类群可通过口咽腔黏膜进行气体交换,即“口腔呼吸”。
感觉器官与神经生物学编辑本段
水中视觉普遍退化,但并非完全丧失。洞螈眼睛埋于皮下,仅能感知明暗变化;负子蟾眼小,位于头顶,适于向上观察。相比之下,侧线系统成为关键感觉通道,其机械感受器(神经丘)沿头部和躯干排列,可探测水流和低频振动。电生理研究表明,鳗螈侧线神经对5-50 Hz的水流刺激敏感,参与捕食和避敌。嗅觉在部分类群中仍重要,如两栖鲵依靠嗅觉定位猎物。听觉方面,多数完全水生两栖动物缺乏鼓膜和中耳听骨,对空气中声音不敏感,但对水中振动通过侧线和骨骼传导感知良好。
繁殖与个体发育编辑本段
完全水生两栖动物的繁殖活动完全在水中进行,卵产于水底或附着于水草。负子蟾的繁殖行为独特:雌性将卵产于背部皮肤形成的育囊中,卵在囊内完成胚胎发育,直接孵出幼蛙,无自由游泳的蝌蚪阶段。洞螈为卵生,每次产卵20-70枚,胚胎期约4个月,幼体具外鳃,经变态后外鳃消失但保留水生生活。鳗螈和两栖鲵的幼体具外鳃,但鳗螈终身保留外鳃,为幼态持续(neoteny)的典型;两栖鲵变态后外鳃消失,但形态变化微小。这些类群的幼体通常直接发育,缺乏陆生两栖类常见的剧烈变态过程,与其稳定水环境生活史相适应。
生态位与行为编辑本段
完全水生两栖动物多分布于淡水静水或缓流水体,如沼泽、池塘、地下水系和溪流。鳗螈常见于美国东南部的沼泽和湿地,底栖,夜间活动,以昆虫幼虫、蠕虫和小鱼为食。两栖鲵栖息于美国东南部溪流和沼泽,穴居,夜行性。洞螈为欧洲喀斯特洞穴特有种,生活于地下水系,以小型甲壳类为食,可耐受长期饥饿,寿命可达100年。负子蟾分布于南美洲亚马逊流域,水生底栖,以水生无脊椎动物和小鱼为食。多数种类领域性强,具发声行为,但水下发声机制尚不明确。
保护现状与科学意义编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。