
树突传导
一、概念界定与历史背景编辑本段
树突传导(dendritic conduction)指神经元树突上产生的电信号(主要为兴奋性/抑制性突触后电位)沿树突向胞体与轴丘传播并发生时空整合的过程。19世纪末,Cajal基于高尔基染色提出树突为“接收装置”的静态观点;20世纪50年代,Eccles等通过细胞内记录发现突触电位在树突上被动衰减,奠定了电缆理论(cable theory)的基础。Rall在20世纪60年代将电缆理论系统应用于树突,提出“等效圆柱”模型,定量描述树突电位的衰减与整合。此后,Llinás与Nicholson(1974)发现树突上的电压门控钙通道,颠覆了树突仅被动传导的观点;Stuart与Sakmann(1994)证实动作电位可反向传入树突(bAP),揭示了树突的主动电学特性。
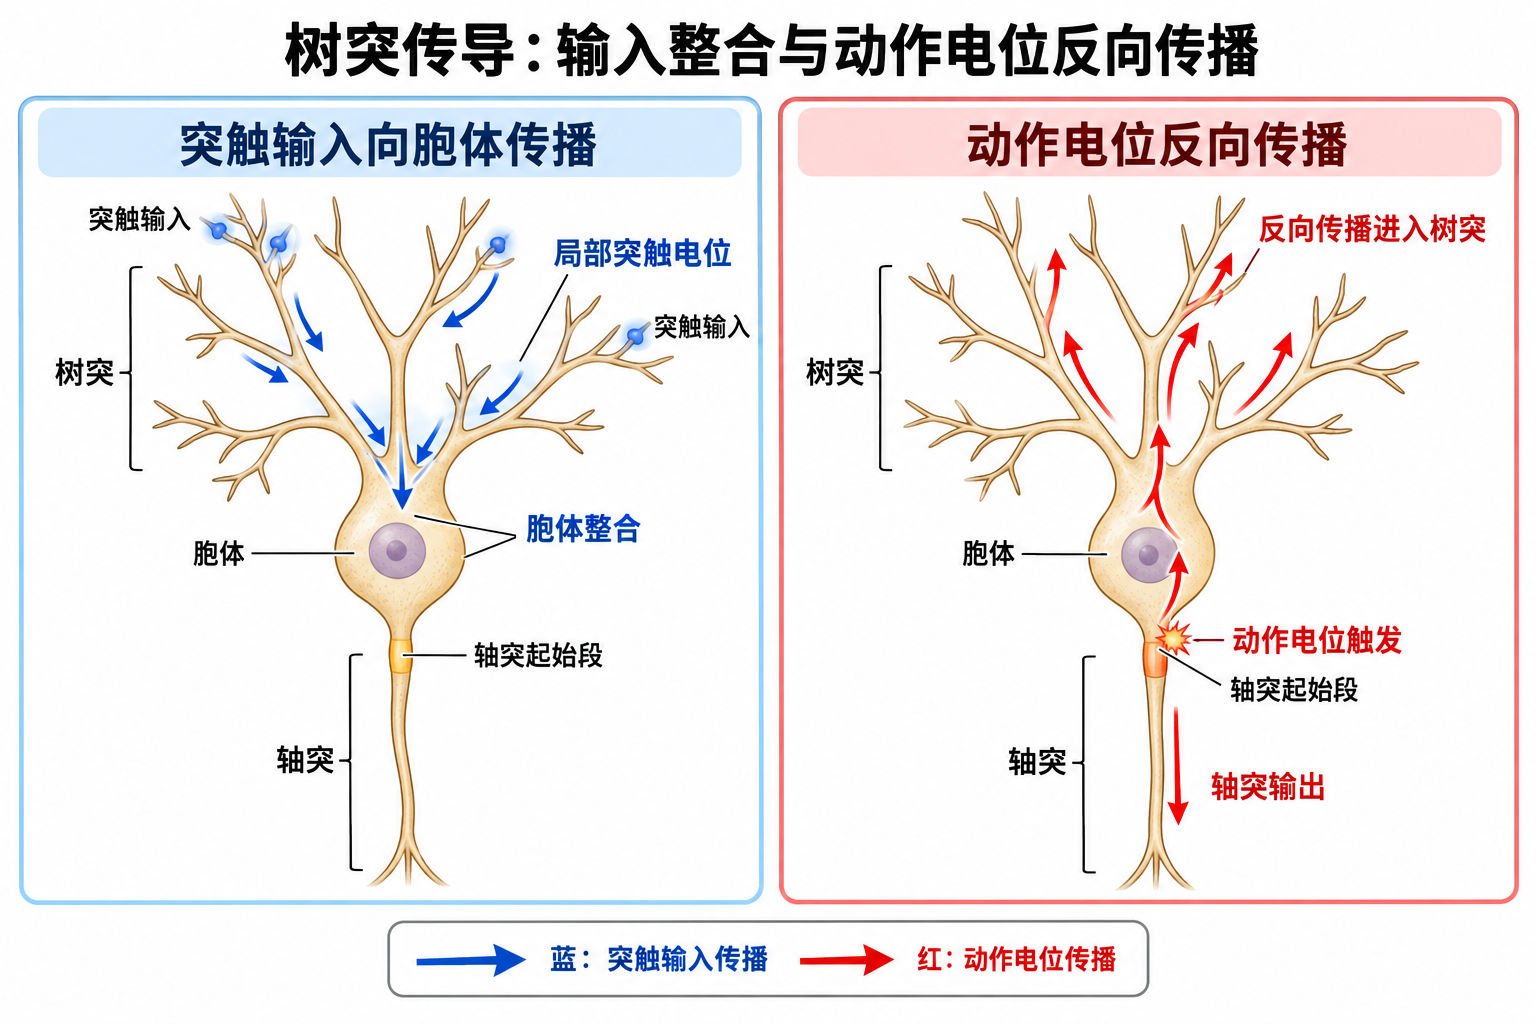 兴奋性突触输入在树突产生局部电位,向胞体传播并参与整合。锥体神经元的动作电位首先在轴突起始段触发,随后经胞体反向传播进入树突;蓝色箭头表示输入传播,红色箭头表示动作电位反向传播。
二、被动电缆特性:衰减与滤波编辑本段
树突的被动传导由电缆方程描述,其核心参数包括膜电阻(Rm)、膜电容(Cm)和轴向电阻(Ra)。信号幅度随距离呈指数衰减,衰减长度常数λ = √(Rmd/(4Ra))(d为树突直径),即信号衰减至初始值1/e的距离。膜时间常数τ = RmCm决定电位的时程。因此,树突对突触输入具有低通滤波特性:远端突触电位到达胞体时幅度小、时程宽,而近端突触电位衰减较小。Rall的等效圆柱模型将树突树简化为对称分支,引入“3/2幂律”判断分支等效性,为定量分析突触整合提供了框架。
三、主动特性:电压门控通道与树突锋电位编辑本段
树突膜上分布多种电压门控离子通道(Na+、Ca2+、K+、HCN等),赋予树突主动电学性质。在锥体神经元顶树突,电压门控Ca2+通道与NMDA受体协同产生树突锋电位(dendritic spike),表现为平台电位或钙锋电位,可显著增强突触输入的线性求和。Na+通道在树突上的不均匀分布支持动作电位的反向传播(bAP),bAP可进入树突并作为突触可塑性的信号。此外,HCN通道介导的Ih电流参与树突的共振与时间整合。树突主动特性使突触整合具有非线性:例如,邻近突触的协同激活可触发局部树突锋电位,实现“分支级”整合。
四、树突棘与信号微区编辑本段
树突棘是兴奋性突触的主要突触后结构,其细长的棘颈构成高电阻屏障,使棘头内的生化与电信号与树突干相对隔离,形成“生化微区”。棘颈的几何形状影响突触电位的传递:棘颈越细长,棘头电位向树突干的传递衰减越大,从而调节突触权重。树突棘的形态可塑性(如棘头增大、棘颈缩短)与长时程增强(LTP)相关,是学习记忆的细胞基础。此外,树突棘内的钙微区与局部信号分子(如CaMKII)的激活依赖于树突传导的时空特性。
五、抑制性输入与树突整合编辑本段
抑制性中间神经元靶向树突的不同部位,通过GABAA受体介导的氯电导对树突传导进行“分流抑制”(shunting inhibition)。位于树突干上的抑制性突触可局部降低膜电阻,缩短λ,从而减弱远端兴奋性输入向胞体的传播。这种空间特异的抑制机制使树突能够对输入进行方向性选择与增益控制。例如,在皮层锥体神经元中,树突抑制可调节感受野的方向选择性。
六、生理意义与病理关联编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。