
合子基因激活
一、定义与生物学意义编辑本段
合子基因激活(Zygotic Genome Activation, ZGA)指受精后胚胎发育到特定阶段,胚胎自身基因组从转录沉默状态被唤醒,开始合成mRNA和多种非编码RNA的过程。在此之前,早期胚胎的发育完全依赖卵母细胞在生长过程中积累的母源mRNA和蛋白质。ZGA标志着母源调控向合子调控的转变(maternal-to-zygotic transition, MZT),是胚胎发育中最关键的转折点之一。ZGA的失败通常导致胚胎发育阻滞甚至死亡,因此其精确时空调控对个体发育至关重要。
在分子水平上,ZGA涉及大规模的转录爆发、转录机器(如RNA聚合酶II)在基因组上的重新招募、染色质结构的开放以及表观遗传标记的重塑。不同物种的ZGA起始时间差异显著:小鼠在2细胞期出现主要ZGA,人类胚胎的主要ZGA发生于4-8细胞期,斑马鱼在囊胚中期(约1000细胞)发生主要ZGA,果蝇则在合胞体囊胚期(第8-14核分裂周期)完成ZGA。这一时间差异与卵母细胞中母源物质的储备量、胚胎发育速度及转录取向密切相关。
二、母源因子与ZGA的启动编辑本段
ZGA的启动并非由单一因子决定,而是由卵母细胞中积累的母源蛋白和RNA共同驱动。在果蝇中,母源转录因子Zelda被认为是ZGA的“先锋因子”,它能结合数千个基因组增强子区域,促进染色质开放并招募RNA聚合酶II,从而启动合子转录。在斑马鱼中,Pou5f1(Oct4)同源因子Pou5f3和Nanog等母源因子协同调控ZGA,而组蛋白变体H2A.Z的沉积也与转录激活相关。在小鼠中,母源因子如DUX家族蛋白(DUX4)和NR5A2(LRH-1)在2细胞期被鉴定为ZGA的关键激活因子,其中DUX4可直接结合ZGA基因的启动子并激活其表达。
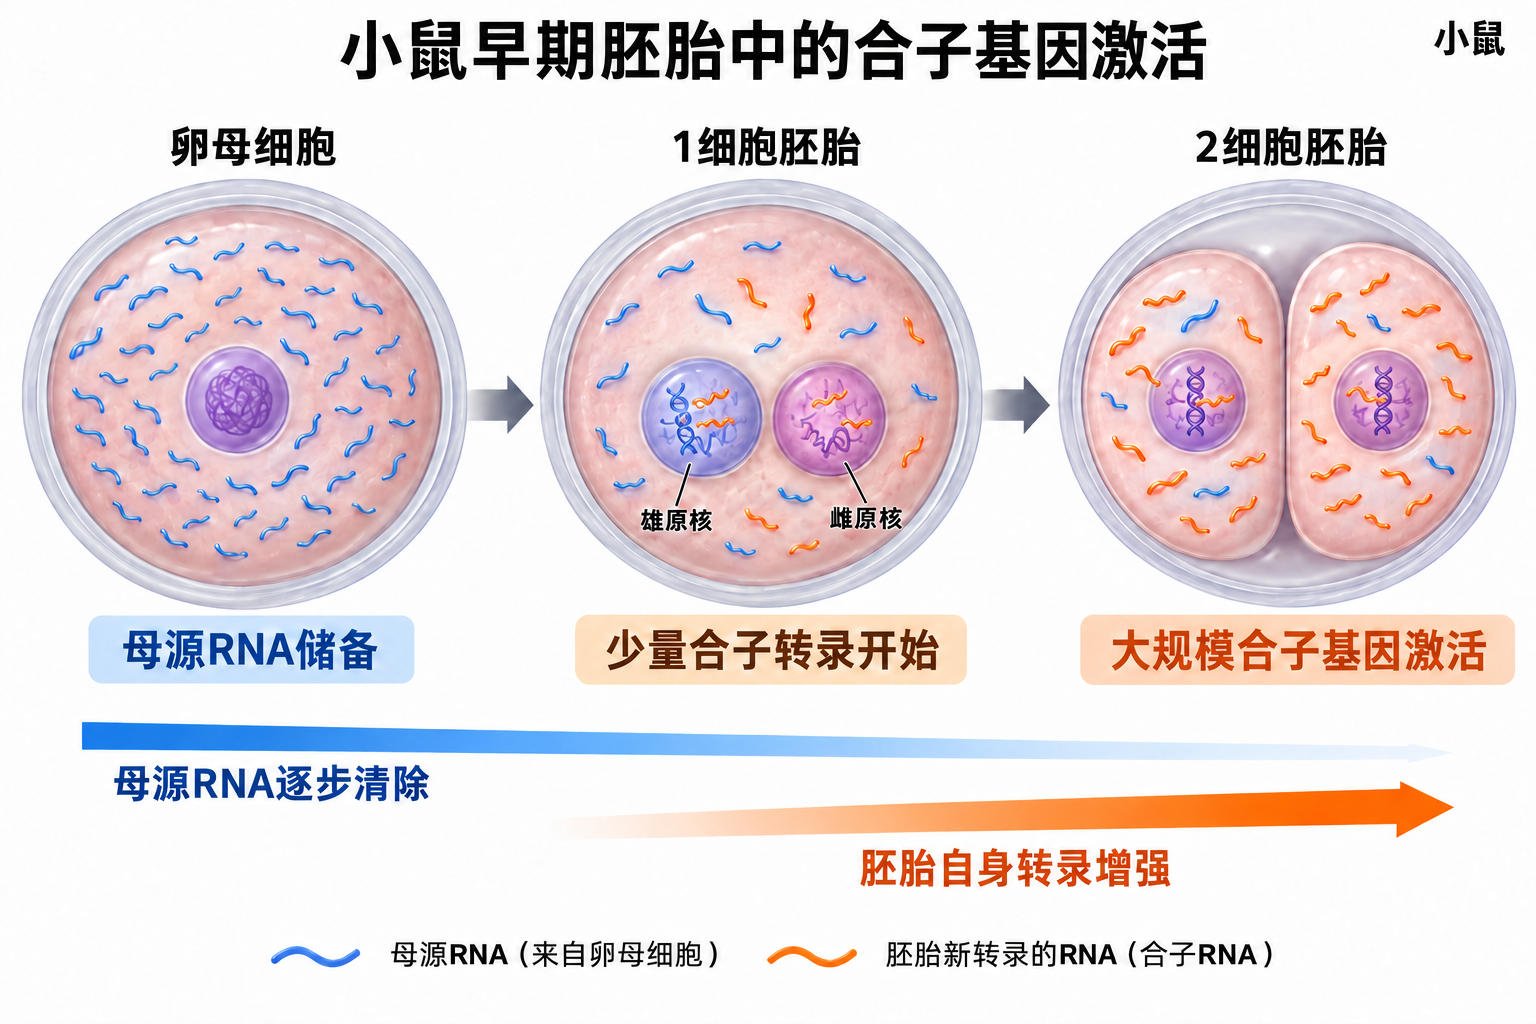 小鼠1细胞胚胎开始少量合子转录,2细胞阶段发生大规模合子基因激活;蓝色表示母源RNA,橙色表示胚胎新转录的RNA。
此外,母源mRNA的降解是ZGA的另一个重要前提。母源mRNA通过多种机制被清除,包括微小RNA(如miR-430在斑马鱼中)、RNA结合蛋白(如Pumilio、Nanog)介导的脱腺苷化、去帽以及核酸外切酶降解等。母源mRNA降解的障碍会导致ZGA延迟或失败,表明母源物质的清除与合子基因激活之间存在紧密的时序耦合。
三、表观遗传与染色质重塑编辑本段
受精后,精子和卵子的高度分化染色质状态需要经历大规模重编程。在哺乳动物中,父源基因组在受精后数小时内发生主动去甲基化,而母源基因组则经历被动去甲基化(依赖DNA复制)。DNA甲基化的降低与组蛋白修饰的改变共同营造了有利于ZGA的染色质环境。例如,组蛋白H3第4位赖氨酸三甲基化(H3K4me3)和H3第27位赖氨酸乙酰化(H3K27ac)等活跃标记在ZGA基因启动子区富集,而抑制性标记如H3K9me3和H3K27me3则被去除或重分布。
染色质重塑复合物在ZGA中也发挥关键作用。SWI/SNF复合物的BRG1亚基在斑马鱼ZGA阶段被招募到合子基因启动子,促进核小体滑动和转录因子结合。在哺乳动物中,组蛋白伴侣如HIRA和DEK参与H3.3的沉积,而H3.3在转录活跃区域的富集是ZGA启动的重要标志。此外,DNA拓扑异构酶和基因绝缘子相关蛋白(如CTCF)也参与ZGA期间染色质三维构象的重组。
四、转录调控与RNA聚合酶II的激活编辑本段
ZGA的核心是RNA聚合酶II(Pol II)从转录沉默状态向活跃转录的转变。在早期胚胎中,Pol II通常处于暂停状态或仅进行低速转录。ZGA时,Pol II在基因启动子区发生磷酸化修饰(如Ser2和Ser5磷酸化),并伴随转录延伸因子的招募。CTD(羧基端结构域)的磷酸化状态被视为转录激活的标志。此外,正性转录延伸因子b(P-TEFb)的活性在ZGA期间被上调,促进Pol II从暂停状态释放。
同时,染色质环化和增强子-启动子相互作用在ZGA期间开始建立。单细胞Hi-C研究显示,在斑马鱼和小鼠ZGA阶段,拓扑关联结构域(TAD)的边界逐渐形成,但完全成熟的三维基因组结构在ZGA之后才建立。这意味着ZGA的转录激活可能先于高阶染色质结构的完全成熟,提示转录因子和表观遗传因子在早期阶段起主导作用。
五、ZGA的多组学特征与检测技术编辑本段
ZGA的鉴定依赖于转录组、表观基因组和蛋白质组的综合分析。传统的RNA-seq在微量胚胎样本中存在局限,而单细胞RNA-seq(如Smart-seq2、CEL-seq)和低起始量RNA-seq(如SUPeR-seq、RamDA-seq)极大提升了ZGA转录本检测的灵敏度。此外,基于RNA聚合酶II的染色质免疫沉淀测序(Pol II ChIP-seq)和转座酶可及性染色质测序(ATAC-seq)被用于评估ZGA期间的转录活性和染色质开放状态。近年来,单细胞多组学技术(如scNMT-seq)可同时检测DNA甲基化、染色质可及性和转录组,为ZGA研究提供了同步动态视图。
值得注意的是,ZGA并非一个全或无的同步事件,而是具有基因特异性的渐进过程。在斑马鱼中,部分基因在ZGA早期即被激活,而另一些基因则在ZGA后期甚至更晚才表达。这种分阶段激活可能由不同增强子或转录因子组合驱动。同样,在小鼠中,2细胞期激活的基因亚群存在异质性,部分基因仅在特定亚群细胞中表达,提示ZGA的调控涉及细胞间差异。
六、ZGA与胚胎发育及疾病编辑本段
ZGA的异常与多种发育障碍和生殖问题相关。在人类辅助生殖中,胚胎在体外培养过程中可出现ZGA延迟或基因表达异常,导致胚胎发育阻滞和着床失败。全基因组关联研究和罕见病家系分析发现,ZGA相关基因(如DUX4、ZSCAN4、PADI6等)的突变与早发性胚胎致死和反复流产相关。此外,ZGA核心因子在体细胞重编程(如诱导多能干细胞,iPSCs)中也被异常激活,可能影响重编程效率和细胞质量。
在进化层面,ZGA的时序和调控网络在不同物种间存在显著差异,但某些核心因子(如DUX家族、Zelda的同源因子)在进化中具有一定保守性。比较胚胎学研究有助于理解ZGA的演化起源及其与生殖策略的关联。例如,胎生动物与卵生动物的ZGA时序差异可能与胚胎营养供给方式和孵化时间有关。
七、研究前景与挑战编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。