
非经典开放阅读框
非经典开放阅读框(non-canonical open reading frame, ncORF)是基因组中一类长期被忽视的翻译单元。经典开放阅读框(ORF)通常指从标准起始密码子ATG开始、以终止密码子结束、长度超过一定阈值(如100个密码子)且编码已知功能蛋白的读框。与之相对,ncORF不符合这些严格标准,它们可能使用非ATG起始密码子(如CTG、GTG、TTG等),长度较短(通常小于100个密码子),位于非编码RNA(如lncRNA、circRNA)、5'或3'非翻译区(UTR)、假基因或与已知基因重叠的区域。随着核糖体图谱(ribosome profiling)和蛋白质组学技术的发展,人们发现ncORF广泛存在且部分具有翻译能力,其产物被称为微蛋白(microprotein)或短开放阅读框编码多肽(SEP)。
1. 概念与分类编辑本段
ncORF可依据其基因组位置和转录本类型分为若干类:上游开放阅读框(uORF)位于主编码序列的5'UTR内,通常抑制下游主ORF的翻译;下游开放阅读框(dORF)位于3'UTR或下游区域;重叠开放阅读框与已知基因的编码区重叠但读框不同;非编码RNA中的开放阅读框包括lncRNA和circRNA中的小ORF;假基因来源的开放阅读框可能因突变失去经典起始或终止信号但仍可翻译。此外,还有移码翻译产生的开放阅读框等。这些ncORF的翻译往往受到特殊机制调控,如核糖体停滞、程序性移码或重复序列介导的翻译起始。
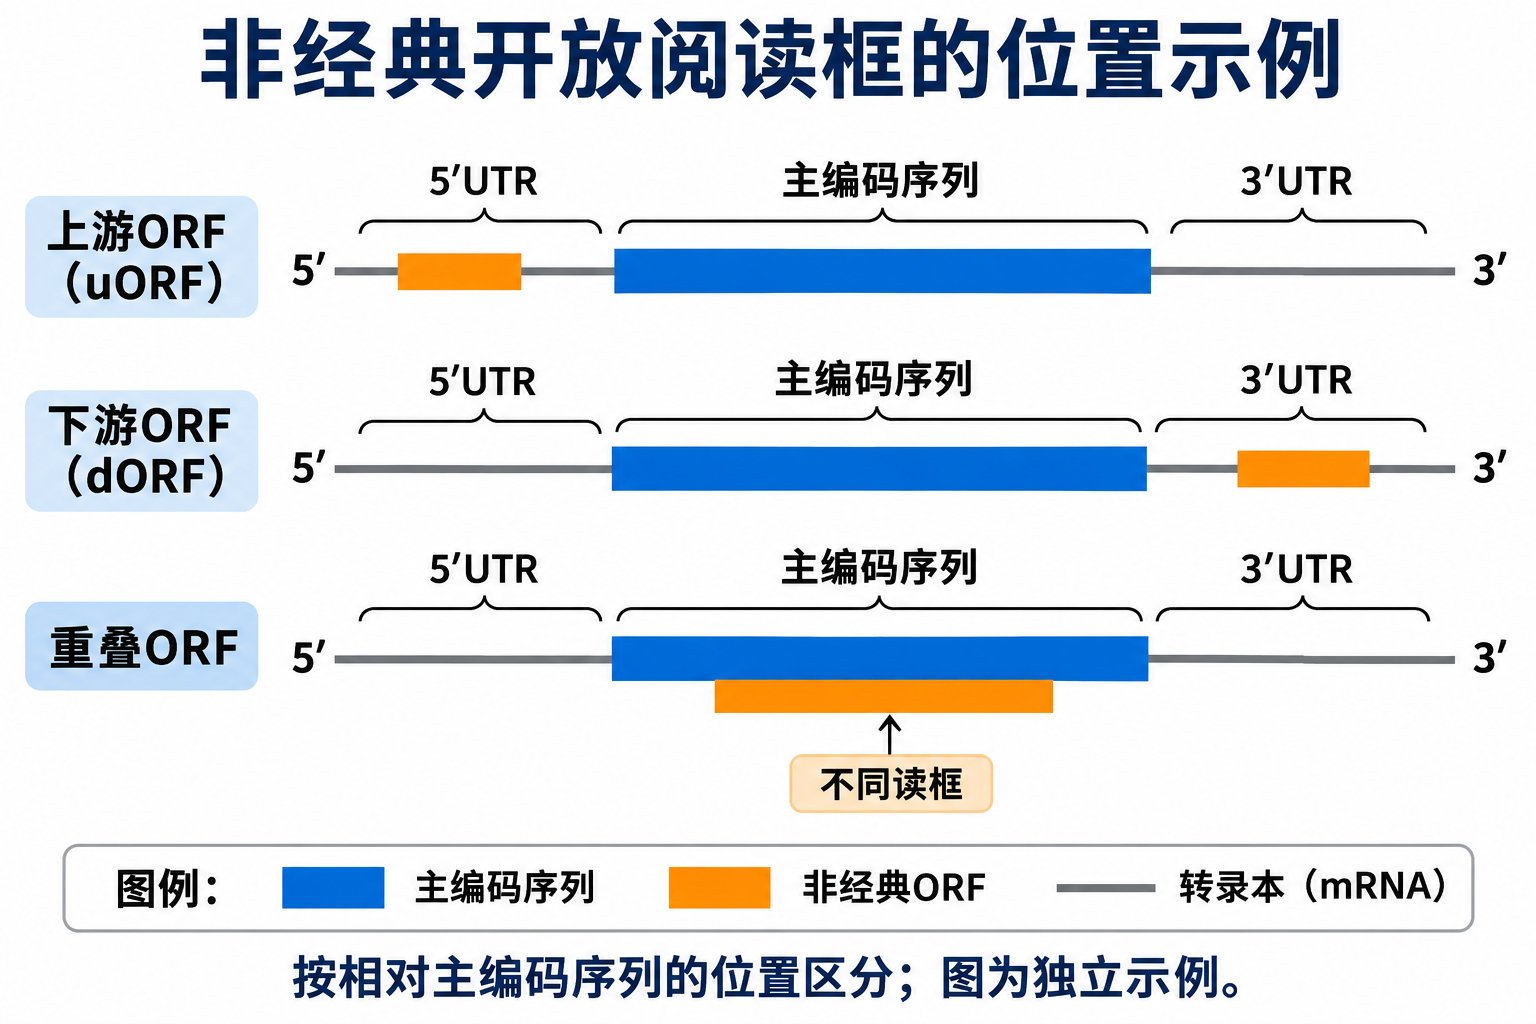 上游ORF位于主编码序列前,下游ORF位于其后;重叠ORF与主编码序列共享部分区域但采用不同读框。
2. 鉴定与验证方法编辑本段
ncORF的系统鉴定依赖于高通量技术与计算预测的结合。核糖体图谱(Ribo-seq)通过测序核糖体保护的mRNA片段,在全基因组范围检测翻译事件,可识别活跃翻译的ncORF。质谱(MS)蛋白质组学可直接鉴定微蛋白,但受限于短肽的离子化效率和数据库完整性。此外,基于序列特征的生物信息学预测(如起始密码子上下文、Kozak序列、RNA二级结构)可辅助筛选候选ncORF。功能验证通常采用报告基因 assay、CRISPR干扰或过表达、以及特异性抗体检测内源微蛋白。近年来,单细胞转录组与Ribo-seq的结合进一步揭示了ncORF翻译的细胞异质性。
3. 翻译调控机制编辑本段
ncORF的翻译调控具有多样性和复杂性。uORF是最典型的调控元件,其翻译可影响主ORF的翻译效率,取决于uORF的长度、与主ORF的距离以及终止密码子后的重新起始能力。非经典起始密码子的使用依赖于起始因子eIF2三元复合物及Kozak序列的强度,通常效率较低但可被应激条件诱导。此外,RNA修饰(如m6A)可促进ncORF的翻译起始;RNA二级结构或上游肽的停滞作用可调节翻译延伸。某些病毒和细胞mRNA利用程序性移码(-1或+1)产生ncORF编码的产物,扩展了遗传信息编码的多样性。
4. 生物学功能编辑本段
已发现的ncORF编码微蛋白在多种生理和病理过程中发挥关键作用。例如,lncRNA LINC00961编码的SPAR多肽可抑制mTORC1信号并促进肌肉再生;circRNA circ-ZNF609编码的蛋白参与肌细胞增殖调控;uORF编码的短肽可调控下游主蛋白的翻译,如CHOP uORF在应激下调节凋亡。在免疫中,ncORF来源的抗原肽可被MHC I类分子递呈,参与肿瘤免疫监视。此外,线粒体基因组中的ncORF可产生调节代谢的微蛋白。这些发现表明ncORF构成了一个隐藏的蛋白质组库,扩展了基因组编码容量。
5. 与疾病的关系编辑本段
ncORF的异常与多种疾病相关。在癌症中,ncORF的翻译重编程可产生促癌或抑癌微蛋白,例如在黑色素瘤中发现的ncORF编码肽可激活MAPK通路。遗传变异可能创建或破坏ncORF,导致疾病易感性。神经退行性疾病中,重复序列相关的ncORF翻译(如C9orf72六核苷酸重复)产生毒性二肽重复蛋白,是致病机制之一。此外,ncORF编码的微蛋白可作为自身抗原,参与自身免疫疾病。因此,ncORF为疾病诊断和靶向治疗提供了新视角。
6. 研究前景与挑战编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。