
色氨酸操纵子
一、发现历史与生物学背景编辑本段
色氨酸操纵子(Trp operon)是分子生物学史上最早被阐明的基因调控系统之一。1953年,法国巴斯德研究所的Jacques Monod与同事在研究中发现,大肠杆菌(Escherichia coli)在含有色氨酸的培养基中生长时,色氨酸合成酶的活性显著下降,提示存在可诱导的抑制机制。此后,Charles Yanofsky及其团队通过精细的遗传学分析,于1960年代逐步揭示了trp操纵子的结构基因组成与调控特性。Yanofsky因在trp操纵子衰减机制方面的开创性工作而闻名。该操纵子与乳糖操纵子(lac operon)共同构成了负调控与正调控的经典范式,是理解原核生物基因表达调控的核心模型。
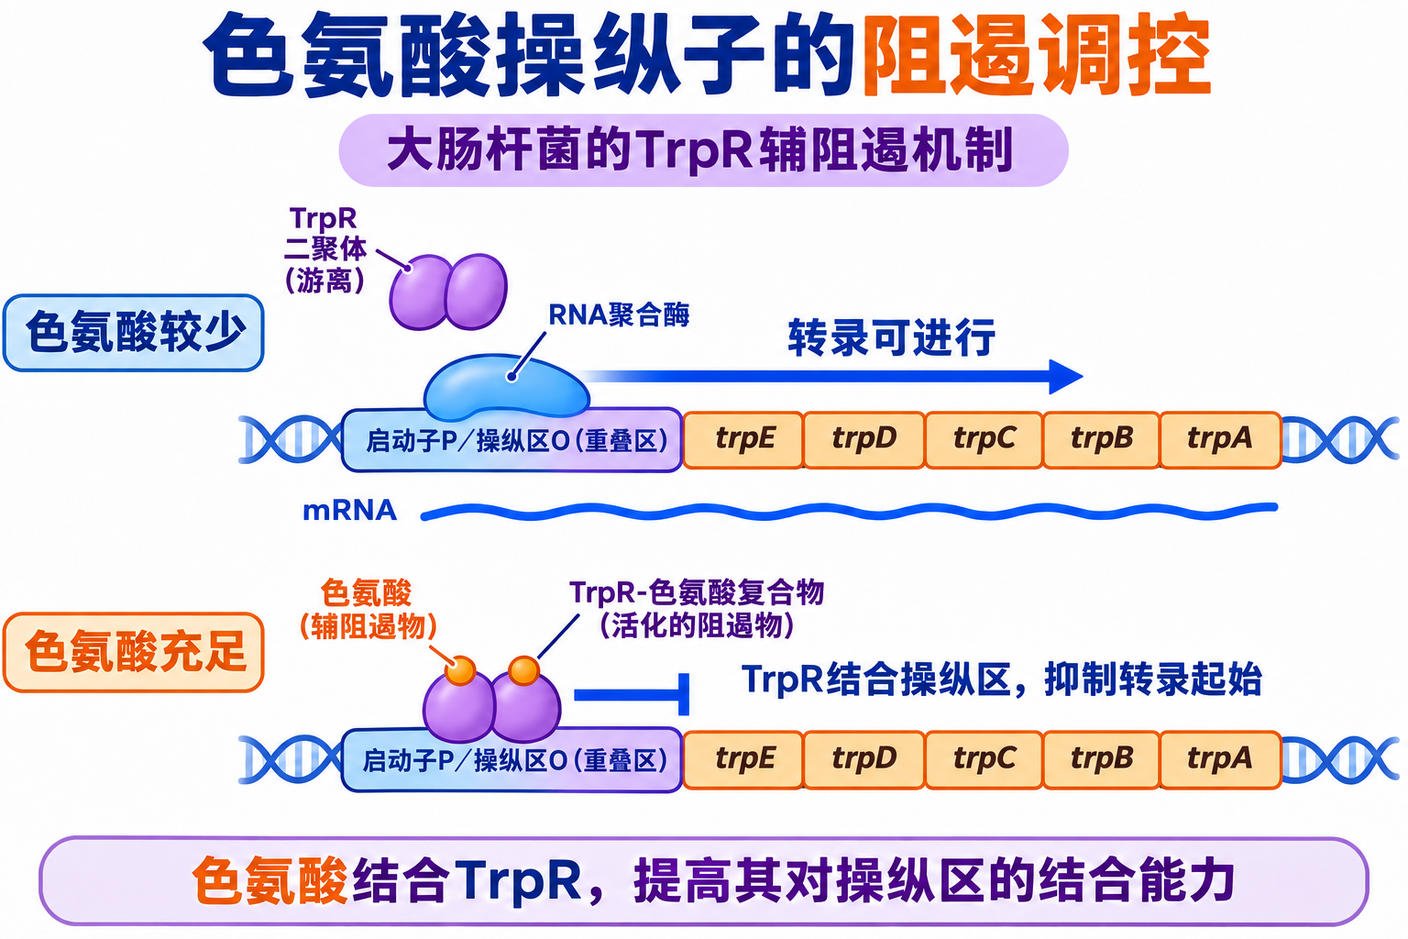 色氨酸较少时,TrpR与操纵区结合较弱,结构基因可被转录;色氨酸充足时作为辅阻遏物结合TrpR,使其结合重叠的启动子/操纵区并抑制转录起始。
二、结构组成编辑本段
色氨酸操纵子位于大肠杆菌染色体约27.8分钟位置,全长约7 kb,由调控区域和结构基因两部分组成。调控区域包括启动子(Ptrp)、操纵基因(Otrp)、前导序列(trpL)及衰减子(attenuator)。结构基因按trpE–trpD–trpC–trpB–trpA顺序排列,分别编码邻氨基苯甲酸合成酶(TrpE)、邻氨基苯甲酸磷酸核糖转移酶(TrpD)、磷酸核糖邻氨基苯甲酸异构酶(TrpC)、色氨酸合成酶β亚基(TrpB)和α亚基(TrpA)。其中TrpC具有双功能,兼具异构酶与吲哚甘油磷酸合成酶活性。trpE与trpD在部分细菌中融合表达,但大肠杆菌中为独立基因。五个结构基因转录为一条多顺反子mRNA(polycistronic mRNA),依次翻译为五种酶,催化分支酸(chorismate)经五步反应最终生成色氨酸。
三、阻遏调控机制编辑本段
色氨酸操纵子属于负调控系统。操纵基因Otrp与启动子部分重叠,是阻遏蛋白(Trp repressor,由trpR基因编码)的结合位点。trpR基因位于染色体远端,独立于trp操纵子,其表达受自身产物的弱反馈调节,但通常维持低水平组成型表达。Trp阻遏蛋白为二聚体,每个亚基含107个氨基酸,属于螺旋-转角-螺旋(helix-turn-helix)DNA结合蛋白家族。当胞内色氨酸浓度低时,阻遏蛋白以无活性构象存在,不能结合Otrp,RNA聚合酶可顺利转录结构基因。当色氨酸充足时,色氨酸作为辅阻遏物(corepressor)与阻遏蛋白结合,诱导其构象改变,使其以高亲和力结合于Otrp,从而阻断RNA聚合酶对启动子的结合与转录延伸。该机制使色氨酸合成酶系在色氨酸充足时被迅速关闭,避免能量浪费。
四、衰减作用(Attenuation)编辑本段
阻遏作用仅能将转录水平降低约70倍,而衰减作用可在此基础上进一步降低约10倍,两者协同实现约700倍的调控幅度。衰减作用的核心在于前导序列trpL。trpL长约162 nt,编码一段14个氨基酸的前导肽(leader peptide),其中第10、11位为连续两个色氨酸密码子(UGG UGG),这是色氨酸感应器的关键。trpL mRNA可折叠形成三种可变二级结构:1区–2区配对、2区–3区配对(衰减子结构)或3区–4区配对(终止子结构)。前导区还包括一个位于1区上游的短开放阅读框。当色氨酸缺乏时,负载色氨酸的tRNATrp不足,核糖体在UGG密码子处停滞,导致mRNA上2区与3区配对,形成抗终止子结构,RNA聚合酶得以继续转录结构基因。当色氨酸充足时,核糖体快速通过前导肽编码区,其行进使3区与4区配对形成富含GC的发夹结构及随后的一串U(终止子),RNA聚合酶在此处暂停并脱落,转录提前终止。衰减作用将转录与翻译偶联,使细菌能够对色氨酸供应变化作出快速响应。
五、调控的生理意义与进化保守性编辑本段
色氨酸操纵子的双重调控体现了原核生物经济利用资源的策略:阻遏作用提供粗调,衰减作用实现精细调节,使色氨酸合成速率与胞内外供应精确匹配。色氨酸合成途径的基因在细菌、古菌及植物中广泛存在,但操纵子组织形式主要见于肠杆菌科。trp操纵子的调控原理还被应用于合成生物学中,作为构建色氨酸响应型生物传感器和基因回路的元件。此外,trpR阻遏蛋白与色氨酸复合物的晶体结构解析(Schevitz等,1985)为理解蛋白质-DNA识别及变构效应提供了重要范例。
六、研究意义与教学价值编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。