
Arp2/3复合体
历史发现与组成编辑本段
Arp2/3复合体于1994年首次从棘阿米巴中纯化鉴定,随后在酵母和哺乳动物细胞中被证实高度保守。该复合体由七个亚基组成:两个肌动蛋白相关蛋白(Arp2和Arp3)与五个独特亚基(ARPC1、ARPC2、ARPC3、ARPC4、ARPC5)。Arp2和Arp3在序列和结构上均与肌动蛋白高度同源,但自身不能形成微丝;五个独特亚基则负责复合体的稳定、定位及与激活因子的相互作用。在哺乳动物中,部分亚基存在多种异构体(如ARPC1A/1B、ARPC5/5L),其表达具有组织特异性,可能赋予复合体功能多样性。
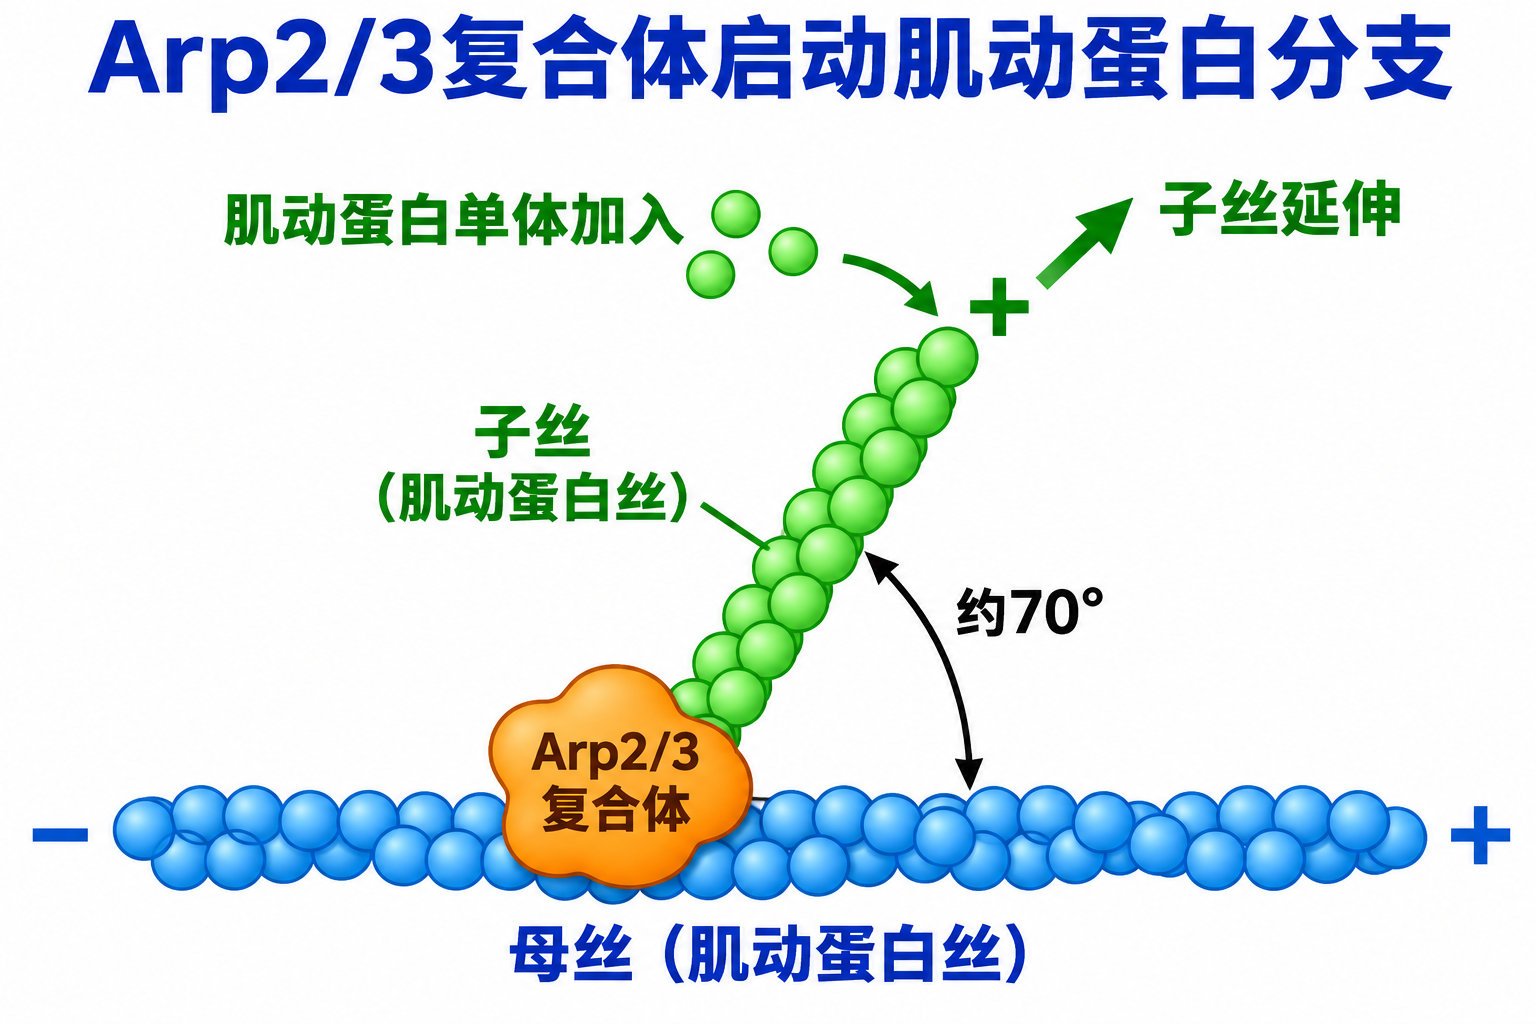 Arp2/3复合体结合母丝侧面并启动约70°的子丝分支,肌动蛋白单体在子丝正端加入并推动延伸。
结构特征与激活机制编辑本段
Arp2/3复合体在静息状态下以自身抑制的构象存在,Arp2与Arp3并未处于可促成核的排列。高分辨率结构研究表明,复合体整体呈类似“马蹄形”的构型,Arp2和Arp3分别位于两端。激活过程需要核苷酸交换(ATP与ADP的交换)以及激活因子(如WASP家族蛋白、WAVE复合体、 cortactin等)的结合。激活因子通常含有VCA结构域(verprolin同源区、cofilin同源区、酸性区),其中VCA区与Arp2/3及肌动蛋白单体协同作用,诱导复合体发生显著的构象重排,使Arp2和Arp3靠近并模拟肌动蛋白二聚体的形式,从而作为成核核心。
此外,磷酸化修饰(如N-WASP的酪氨酸磷酸化)和磷脂(如PIP2)也参与调控复合体的活性。近年冷冻电镜研究进一步揭示了激活态复合体的精细构象变化,包括亚基间的旋转与位移,为理解成核机制提供了结构基础。
生物学功能编辑本段
Arp2/3复合体是分支状肌动蛋白网络形成的核心引擎。其最经典的功能是与已有的母丝结合,在母丝侧面以约70°的角度启动子丝成核,形成“树状”分支结构。这一过程在细胞迁移的片状伪足和丝状伪足延伸、内吞作用、自噬体形成、细胞器运动以及病原体(如李斯特菌)的肌动蛋白彗星尾部形成中不可或缺。
在细胞迁移中,Arp2/3复合体受Rho家族小GTP酶(如Rac1、Cdc42)信号通路调控,通过WAVE和N-WASP等激活因子介导,驱动前沿膜突出。此外,它参与细胞间粘附连接的维持、免疫突触的形成以及神经元树突棘的形态发生。在植物中,Arp2/3复合体同样参与细胞形态建成与病原防御。
调控机制编辑本段
Arp2/3复合体的活性受到多层次调控:
1. 激活因子:WASP/N-WASP、WAVE1-3、WASH、WHAMM、JMHY等均含VCA结构域,通过协同结合Arp2/3和肌动蛋白单体促进成核。不同激活因子介导特定亚细胞定位的肌动蛋白组装。
2. 抑制因子:如 coronin 和 gadkin 可抑制复合体活性,防止异常成核;Arpin则通过竞争性结合Arp2/3抑制分支形成。
3. 磷酸化与泛素化:复合体亚基可被磷酸化修饰(如ARPC1的酪氨酸磷酸化),影响其与激活因子的结合;泛素化则可能调控其降解与定位。
4. 核苷酸状态:Arp2和Arp3结合的ATP水解速率影响复合体与分支连接的稳定性,ATP水解后分支倾向于解聚。
与疾病的关系编辑本段
Arp2/3复合体功能异常与多种疾病相关:
免疫缺陷:ARPC1B或ARPC2突变可导致联合免疫缺陷病,表现为反复感染、血小板减少和湿疹,机制涉及白细胞迁移和免疫突触形成障碍。
神经系统疾病:在阿尔茨海默病中,Arp2/3复合体介导的树突棘重塑异常可能与突触丢失相关;在智力障碍和小头畸形中,WASP家族激活因子或复合体亚基突变已被鉴定。
癌症:Arp2/3复合体高表达促进肿瘤细胞迁移和侵袭,与乳腺癌、结直肠癌等预后不良相关。靶向Arp2/3的小分子抑制剂(如CK-666)在临床前研究中显示抗转移潜力。
病原体感染:李斯特菌、志贺氏菌等利用宿主Arp2/3复合体形成肌动蛋白彗星尾部以实现细胞内播散;病毒(如痘病毒)也劫持该复合体促进释放。
研究工具与展望编辑本段
常用研究工具包括CK-666(特异性小分子抑制剂)、针对亚基的抗体及基因敲除/敲低模型。近年来,冷冻电镜与单分子技术揭示了复合体在分支连接处的动态构象,而光遗传学与活细胞成像技术则用于时空解析其活性。未来研究将聚焦于亚基异构体的特异性功能、复合体在组织发育与疾病中的精确调控网络,以及靶向Arp2/3复合体的药物开发。
总结编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。