
pegRNA
一、概念界定与分子组成编辑本段
pegRNA(prime editing guide RNA)是引导编辑系统(prime editing)中兼具靶向与编码功能的工程化RNA分子。2019年,Anzalone等在Nature上首次报道了prime editing技术,并定义了pegRNA这一核心组件。从分子架构看,pegRNA是一种在经典单向导RNA(sgRNA)基础上进行3'端延伸改造的嵌合RNA,其分子可划分为相互协同的四个结构域:其一为5'端约20个核苷酸的间隔序列(spacer),负责与基因组靶位点互补配对,决定编辑的序列特异性;其二为sgRNA骨架(scaffold),形成多个茎环结构,与Cas9切口酶(Cas9-H840A)结合并维持核糖核蛋白复合物的稳定;其三为紧接骨架3'端的引物结合位点(primer binding site,PBS),通常为8~17个核苷酸,可与Cas9切口后暴露的靶DNA链3'端游离单链互补配对,为逆转录提供引物;其四为逆转录模板(reverse transcriptase template,RTT),位于PBS下游,编码希望写入基因组的新序列,其长度依据所需插入、缺失或替换的碱基数而定。
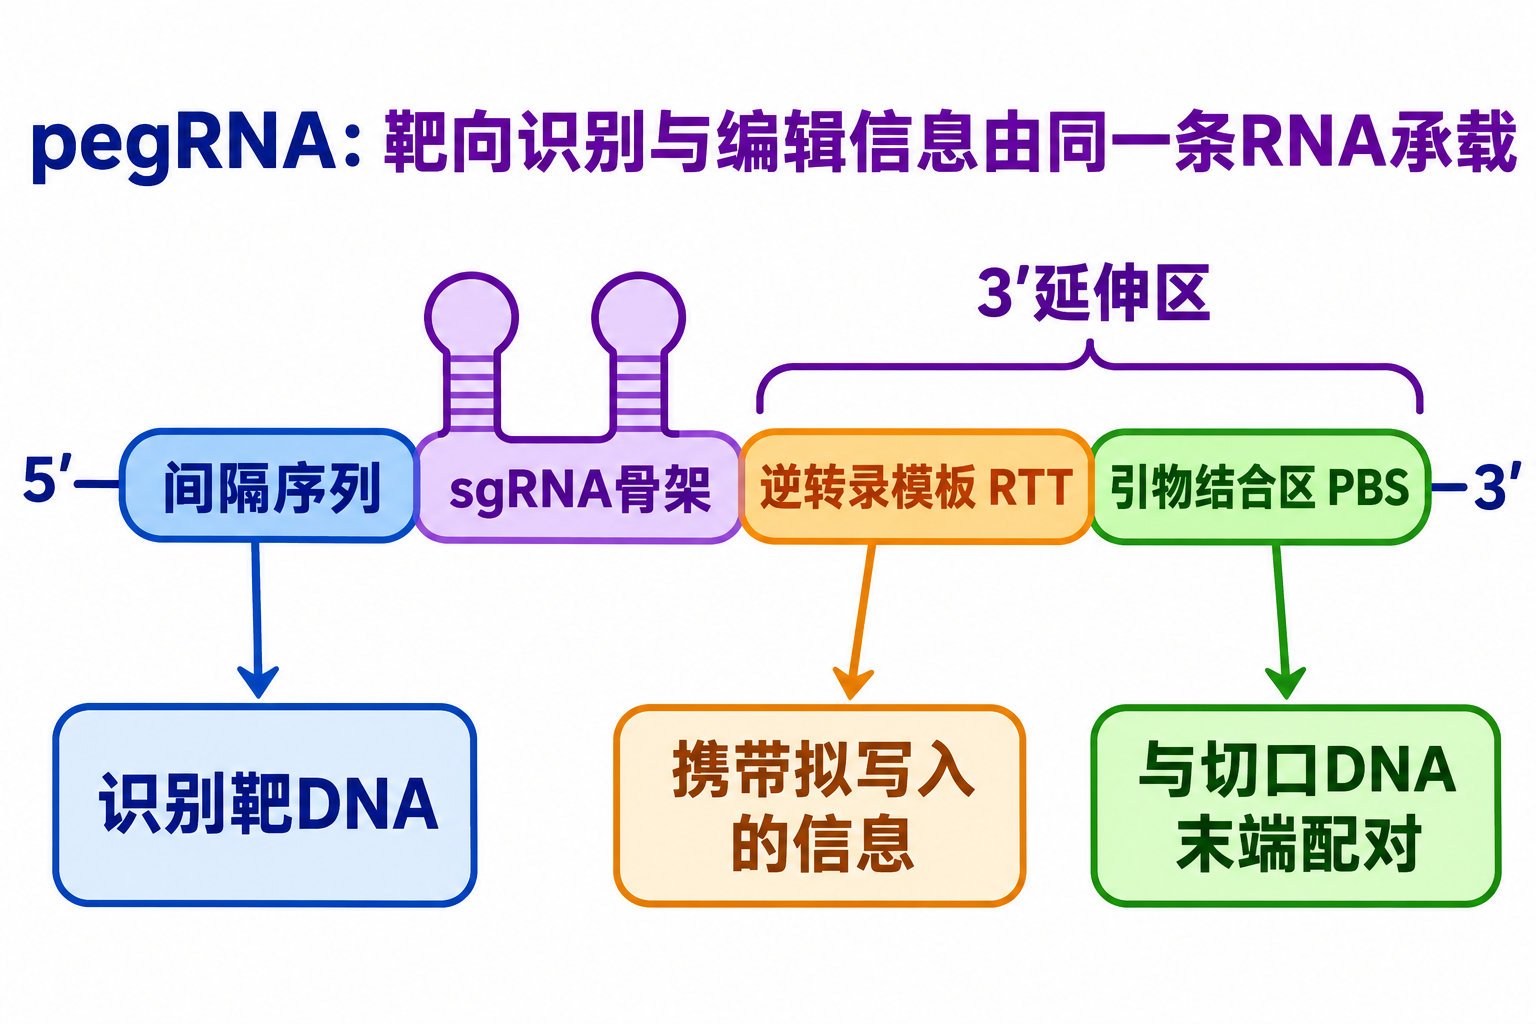 pegRNA依次包含间隔序列、sgRNA骨架、逆转录模板和引物结合区,分别承载靶向识别、编辑信息与切口DNA末端配对功能。
与sgRNA仅负责引导核酸酶切割不同,pegRNA同时充当“地址标签”与“信息载体”,这是prime editing区别于CRISPR-Cas9常规切割与碱基编辑器的根本特征。
二、作用机制:从切口到精准写入编辑本段
pegRNA介导的引导编辑过程可拆解为以下有序步骤。首先,pegRNA与Cas9-H840A切口酶及工程化逆转录酶(如M-MLV RT的改造版本)组装成三元核糖核蛋白复合物。复合物通过间隔序列与靶DNA的碱基互补配对,在原型间隔序列相邻基序(PAM)上游定位,Cas9-H840A仅在靶链上产生一个单链切口,而非双链断裂。随后,切口产生的3'端游离DNA链与pegRNA的PBS发生互补配对,形成逆转录引物-模板复合体。逆转录酶以pegRNA的RTT为模板,从PBS的3'端起始延伸,将RTT编码的序列直接合成于切口处的DNA链3'端。新合成的3'端序列随后与基因组DNA的另一条链竞争配对,通过细胞内的错配修复与链置换过程,将编辑信息固定于基因组中。根据编辑类型的不同,prime editing可进一步分为PE2、PE3、PE3b等策略:PE3在靶位点对侧引入第二条切口(由普通sgRNA引导),以促进新链优先被保留;PE3b则使用与编辑后序列匹配的切口sgRNA,以降低副产物。此外,PE4/PE5等系统通过共表达错配修复抑制因子(如MLH1dn)进一步提升效率,而双pegRNA(dual pegRNA)策略可同时实现较大片段的插入或删除。
值得注意的是,pegRNA的3'端延伸结构可能形成二级结构或与间隔序列发生分子内配对,从而影响其与Cas9的组装及逆转录效率。因此,pegRNA的理性设计需兼顾PBS长度、RTT长度、切口与编辑位点的相对位置(通常位于PAM上游约3 bp处)、3'端保护性修饰(如添加结构化基序)以及避免RTT与PBS形成稳定二级结构等参数。
三、设计原则与优化策略编辑本段
pegRNA的设计是决定引导编辑效率的关键。PBS长度过短会导致引物配对不稳定,过长则可能引发pegRNA自身折叠或非特异性结合,常用范围为8~15 nt,需通过实验筛选确定最优值。RTT长度需覆盖待写入序列并预留一定同源臂,通常为10~30 nt;对于大片段插入,可采用“flap”策略或双pegRNA切割。间隔序列需避免脱靶,并符合SpCas9或其它Cas变体的PAM要求。近年来,研究者发展了基于深度学习的pegRNA活性预测模型(如DeepPrime、PRIDICT),以及高通量筛选平台(如PRIME-DS、Massively parallel reporter assay),可显著减少实验试错成本。此外,在pegRNA 3'端引入tevopreQ1等稳定化基序,或采用化学修饰核苷酸(如2'-O-甲基、硫代磷酸修饰),可提高pegRNA的胞内稳定性与编辑效率。
四、应用前景与挑战编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。
如果您认为本词条还有待完善,请 编辑
上一篇 亚硫酸氢盐测序 下一篇 全基因组亚硫酸氢盐测序