
内共生
内共生的定义与概念演变编辑本段
内共生(endosymbiosis)描述了一种生态与进化关系:一种生物(内共生体)生活在另一种生物(宿主)的细胞或体内,双方形成稳定且通常互利的关联。这一概念最早由德国植物学家Anton de Bary于1879年提出,用以描述地衣中真菌与藻类的共生现象。然而,内共生在细胞进化中的核心地位直到20世纪60年代才被重新认识。Lynn Margulis(当时名为Lynn Sagan)于1967年发表题为《有丝分裂细胞的起源》的论文,系统提出了连续内共生理论(serial endosymbiosis theory, SET),主张真核细胞起源于多个原核生物通过内共生事件的整合。尽管最初遭到激烈反对,随着分子系统学证据的积累,该理论在20世纪80年代后被广泛接受,并成为现代进化生物学的基石之一。
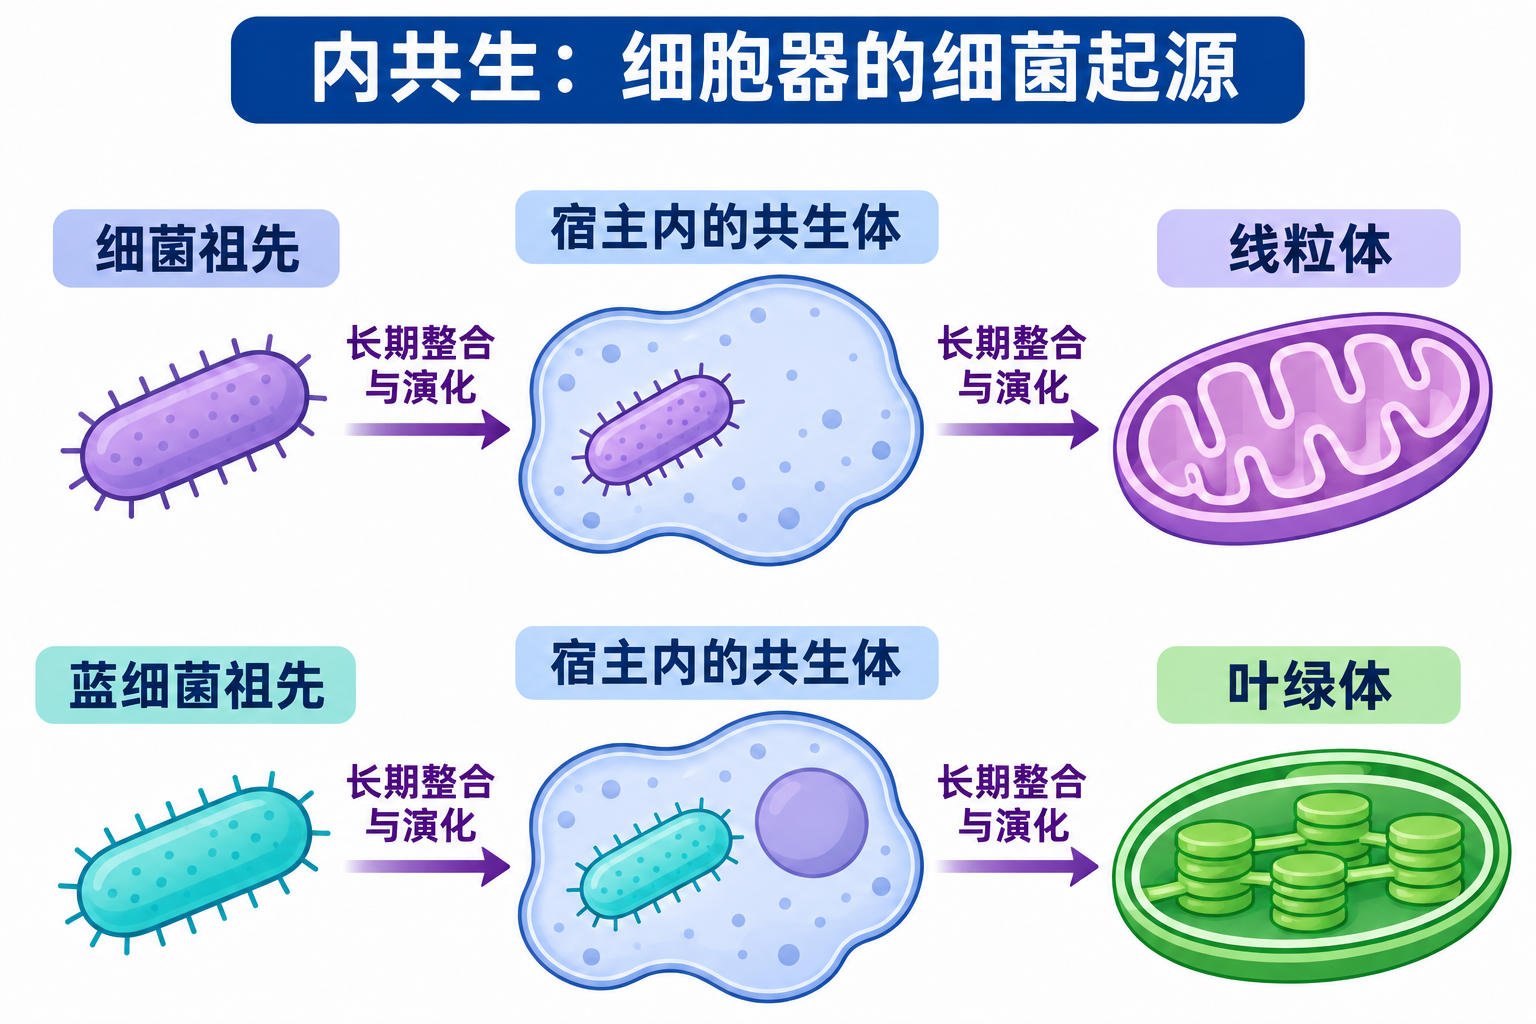 细菌祖先在宿主体内长期整合并演化为线粒体;蓝细菌祖先的内共生形成叶绿体,图中分别显示内膜嵴和类囊体堆叠。
内共生的类型编辑本段
根据共生体与宿主的关系以及共生体来源,内共生可分为初级内共生(primary endosymbiosis)与次级内共生(secondary endosymbiosis)。初级内共生是指一个自由生活的原核生物被真核宿主细胞吞噬后未被消化,最终演化为细胞器。线粒体起源于α-变形菌(Alphaproteobacteria)的祖先,而叶绿体起源于蓝藻(Cyanobacteria)的祖先。次级内共生则是指一个已经含有初级内共生体(叶绿体)的真核细胞被另一个真核宿主吞噬,形成具有多层膜结构的质体,这一过程在藻类进化中多次独立发生,如硅藻、褐藻和眼虫等。此外,根据共生体是否必须依赖宿主生存,还可分为专性内共生(obligate endosymbiosis)和兼性内共生(facultative endosymbiosis)。
内共生理论的核心证据编辑本段
支持内共生理论的证据来自多个学科。首先,线粒体和叶绿体具有自己的环状DNA基因组,其结构与细菌染色体相似,且缺乏组蛋白。其次,这些细胞器拥有独立的蛋白质合成系统,其核糖体为70S(与细菌一致),对抗细菌的抗生素(如氯霉素)敏感。第三,细胞器通过类似二分裂的方式增殖,且其分裂机制与细菌相似。第四,分子系统学分析表明,线粒体基因与α-变形菌(特别是立克次氏体目)高度同源,叶绿体基因与蓝藻同源。第五,细胞器具有双层膜结构,其内膜与外膜在脂质组成和转运特性上存在差异,反映了吞噬过程的痕迹。此外,一些现代生物(如某些双壳类、珊瑚和昆虫)中存在的内共生现象为研究早期内共生事件提供了活体模型。
内共生过程中的基因组整合与基因转移编辑本段
内共生发生后,共生体基因组经历了大规模缩减和向宿主核基因组的转移,这一过程称为内共生基因转移(endosymbiotic gene transfer, EGT)。许多原本由共生体编码的基因被转移到宿主核中,其产物通过特定的蛋白质转运系统(如线粒体的TOM/TIM复合体和叶绿体的TOC/TIC复合体)回运至细胞器内。因此,线粒体和叶绿体基因组仅保留少数基因,主要编码呼吸链或光合作用的核心组分以及自身核糖体RNA和部分tRNA。基因组缩减和基因转移的程度因物种而异,例如某些专性内共生菌的基因组已缩减至不到200 kb,几乎丧失独立生存能力。内共生基因转移是解释真核细胞核基因组中大量细菌起源基因的关键机制。
现代内共生案例及其生物学意义编辑本段
除了线粒体和叶绿体,自然界中还存在多种内共生案例。例如,蚜虫体内的Buchnera aphidicola为其提供必需氨基酸,而宿主则为共生体提供稳定的营养环境;深海管虫的化能合成共生菌帮助宿主利用硫化物;某些昆虫(如叶蝉)甚至拥有多种共生体共同参与代谢网络。这些系统成为研究共生关系建立、维持和基因组进化的模式。此外,内共生在农业和医学中亦有重要意义,如根瘤菌与豆科植物的共生固氮,以及某些病原体(如立克次氏体)与宿主细胞的相互作用。
内共生与真核细胞起源编辑本段
内共生理论是解释真核细胞起源的主流学说。根据该理论,真核细胞的出现经历了多个阶段:首先,一个古菌宿主吞噬了一个α-变形菌,形成了线粒体;随后,部分谱系进一步获得了蓝藻内共生体,形成叶绿体。这一过程为真核细胞提供了高效的能量代谢和光合作用能力,推动了复杂多细胞生物的演化。近年来的研究还提出,线粒体的获得可能是真核细胞形成的先决条件,而非结果,这一观点被称为“线粒体早期”假说,仍在讨论中。
研究展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。