
扩展遗传密码
一、概念与历史渊源编辑本段
扩展遗传密码(Expanded Genetic Code)是指在天然20种标准氨基酸之外,通过人为干预使生物体能够利用额外氨基酸或非天然碱基对进行蛋白质翻译的遗传编码体系。其思想最早可追溯至20世纪60年代遗传密码破译时期,但真正实现始于2001年Schultz实验室在Escherichia coli中利用正交氨酰-tRNA合成酶/tRNA对成功引入O-甲基-L-酪氨酸。此后二十年,该技术从单细胞扩展至哺乳动物、病毒甚至整条合成基因组,成为合成生物学与化学生物学的核心工具。
二、核心策略与分子机制编辑本段
扩展遗传密码的实现主要依赖四大策略:
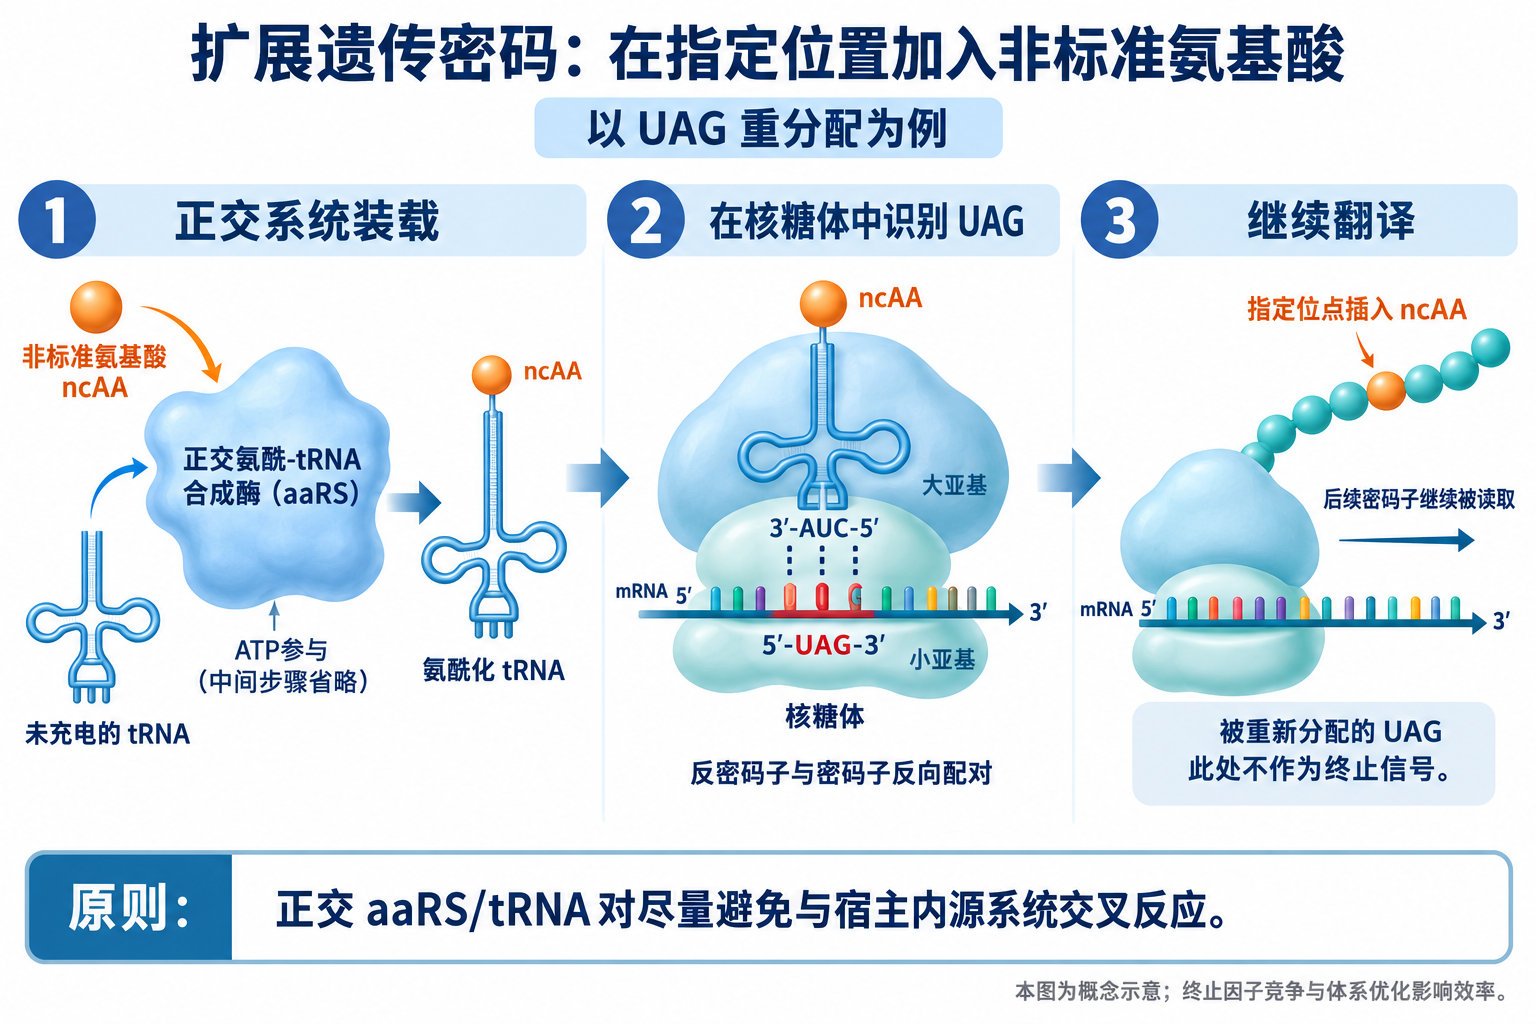 UAG重分配示例:正交氨酰-tRNA合成酶将非标准氨基酸装载到tRNA上;其反密码子与mRNA中的UAG反向配对,使非标准氨基酸在指定位置插入肽链。终止因子竞争及体系优化会影响效率,图为概念示意。
1. 终止密码子重编码:最常用的是将琥珀密码子UAG重新定义为非天然氨基酸(ncAA)的编码子。通过引入正交的氨酰-tRNA合成酶(aaRS)和对应的抑制性tRNA(sup-tRNA),使ncAA特异性加载到tRNA上,并在核糖体A位点识别UAG,从而在蛋白质中定点插入ncAA。为避免与释放因子RF1的竞争,常需敲除或抑制prfA基因。
2. 四联体密码子:利用四联体密码子(如AGGA)及其对应的四联体tRNA,可在不干扰天然密码子的前提下引入ncAA。该策略依赖核糖体对四联体密码子的高效翻译,需工程化改造tRNA反密码子环及延伸因子EF-Tu。
3. 非天然碱基对:通过引入非天然碱基对(如dNaM-dTPT3)扩展DNA碱基字母表,进而转录出含非天然碱基的mRNA,在核糖体上编码ncAA。该策略从根本上扩展了遗传信息存储容量,但面临碱基对稳定性与聚合酶识别效率的挑战。
4. 密码子重分配:通过全基因组重编码,将某些稀有密码子或冗余密码子从基因组中彻底删除,再将其重新分配给ncAA。例如,2019年报道的E. coli Syn61菌株删除了两个丝氨酸密码子和一个终止密码子,为密码子重分配提供了“空白密码子”。
三、关键正交系统编辑本段
正交性(orthogonality)是扩展遗传密码的核心要求,即外源aaRS/tRNA对与宿主内源翻译系统互不干扰。目前最广泛使用的正交系统包括:
M. jannaschii TyrRS/tRNACUA:源自甲烷八叠球菌,其tRNA反密码子突变为CUA以识别UAG,aaRS经过定向进化可特异性识别多种ncAA(如p-叠氮苯丙氨酸、炔基酪氨酸)。
PylRS/tRNAPyl:源自产甲烷古菌Methanosarcina mazei,天然识别吡咯赖氨酸(Pyl),其正交性优异,广泛用于哺乳动物细胞中引入多种ncAA。
EcTyRS/tRNACUA:源自E. coli酪氨酰-tRNA合成酶,经改造后可用于酵母及哺乳动物细胞。
四、应用领域编辑本段
1. 生物制药:利用ncAA定点偶联抗体-药物偶联物(ADC),如将p-乙酰苯丙氨酸引入抗体Fc段,通过点击化学连接细胞毒性药物,实现均一化ADC制备。
2. 蛋白质标记与成像:引入含叠氮或炔基的ncAA,通过点击化学连接荧光探针,实现活细胞内蛋白质特异性标记与超分辨成像。
3. 光遗传学与生物材料:引入光交联氨基酸(如p-叠氮苯丙氨酸)可捕获瞬时蛋白相互作用;引入含硼酸或硅烷的ncAA可构建智能生物材料。
4. 合成基因组学:通过全基因组重编码赋予生物体抗病毒能力,如Syn61菌株对多种噬菌体具有抗性,为生物安全提供新策略。
五、挑战与前景编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。