
雌雄异色
一、定义与概念界定编辑本段
雌雄异色(Sexual Dichromatism)指同一物种内,雌性与雄性个体在体色(包括色素沉着、结构色、斑纹模式等)上呈现稳定且可辨识差异的现象。它是性二型(Sexual Dimorphism)在色彩维度上的具体表达,通常与雌雄在体型、形态、行为等方面的分化协同出现。雌雄异色不等同于雌雄异型(Sexual Dimorphism)的全部内涵,但因其直观性和可量化性,成为进化生态学研究中最常被测量的性二型性状之一。
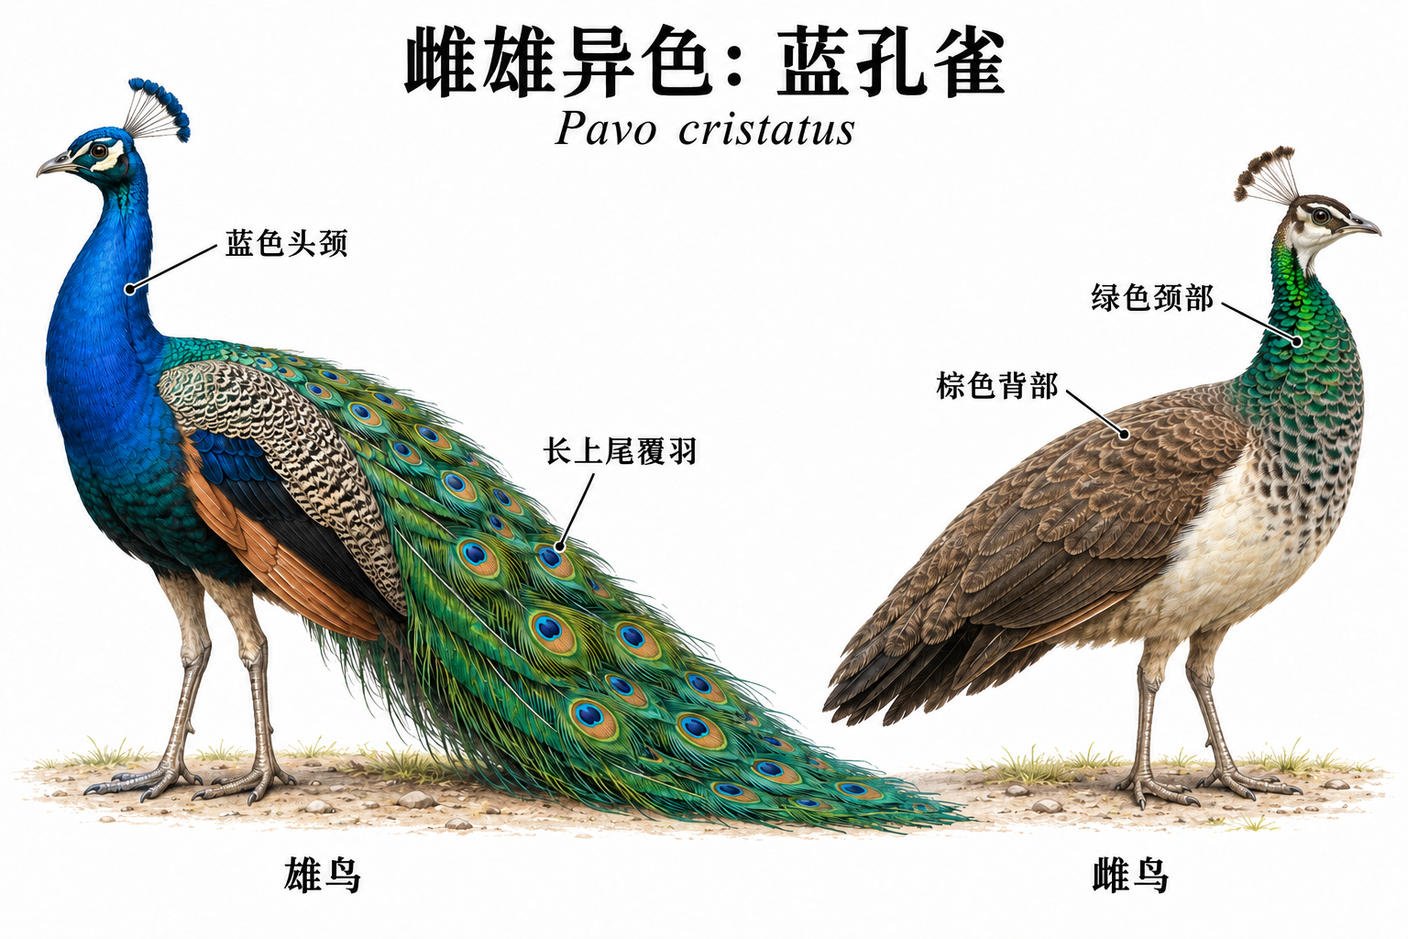 蓝孔雀雄鸟具有蓝色头颈和带眼斑的长上尾覆羽;雌鸟背部为棕色、颈部呈绿色,缺少雄鸟的长上尾覆羽。两者头顶均有扇形羽冠。
在概念上,雌雄异色需与季节性色变(Seasonal Color Change)、年龄相关的体色变化(Ontogenetic Color Change)以及个体间随机色差相区分。严格的雌雄异色应满足:差异在性成熟后稳定表达、与性别决定系统相关联、且具有可遗传的发育基础。
二、表现类型与分类编辑本段
根据色素来源和光学机制,雌雄异色可分为以下几类:
1. 色素性雌雄异色(Pigmentary Dichromatism):由黑色素(Melanin)、类胡萝卜素(Carotenoids)、蝶呤(Pteridines)等色素的种类或含量差异导致。例如,家燕(Hirundo rustica)雄性尾羽中黑色素沉积显著高于雌性;许多雀形目鸟类雄性的类胡萝卜素依赖的橙红色羽色在雌性中表达较弱。
2. 结构性雌雄异色(Structural Dichromatism):由羽毛、鳞片或表皮中的纳米结构(如角蛋白阵列、鸟嘌呤晶体)对光的干涉、散射产生。例如,孔雀(Pavo cristatus)雄性尾屏的虹彩光泽源于二维光子晶体结构,而雌性缺乏此类结构。结构色与色素色常协同作用,形成复合色彩信号。
3. 紫外雌雄异色(UV Sexual Dichromatism):人类视觉不可见但在紫外波段存在的雌雄差异。许多鸟类和蜥蜴的体表具有紫外反射斑块,雌雄在紫外反射强度或面积上存在显著差异,此类差异在性选择研究中具有重要功能意义。
三、进化机制与理论编辑本段
雌雄异色的进化解释主要围绕性选择与自然选择的权衡展开。
性选择理论:达尔文(1871)在《人类的由来与性选择》中提出,雄性鲜艳体色是性选择的结果,通过雌性偏好(Intersexual Selection)或雄性间竞争(Intrasexual Selection)得以维持。现代研究通过实验验证了雌性偏好对雄性色彩特征的定向选择,例如非洲 widowbird(Euplectes progne)尾羽长度实验表明雌性偏好超常尾羽。性选择理论预测,雌雄异色程度应与繁殖成功率方差、配偶选择强度正相关。
自然选择与捕食压力:华莱士强调,雌性的隐蔽色(Cryptic Coloration)是自然选择降低捕食风险的结果,尤其在孵卵和育雏阶段。雌性在繁殖期承担更多亲代投入,隐蔽色可提高存活率。因此,雌雄异色的进化是性选择促进雄性醒目信号与自然选择塑造雌性隐蔽色之间的进化权衡(Evolutionary Trade-off)。
繁殖角色假说:雌雄异色程度与繁殖角色分化密切相关。在雄性竞争激烈、雌性选择权大的物种中,雄性体色更鲜艳;而在雌性竞争激烈(如性角色逆转)的物种中,雌性可能更鲜艳。例如,彩鹬(Rostratula benghalensis)雌性比雄性更鲜艳,与雌性争夺雄性的性角色逆转一致。
寄生虫与免疫假说:Hamilton-Zuk 假说认为,雄性鲜艳体色是抗寄生虫能力的诚实信号(Honest Signal),因为色素沉积和免疫防御共享生理资源。类胡萝卜素既是色素前体又是免疫调节剂,雄性高表达类胡萝卜素色彩可能反映其健康状况和遗传质量。
四、生理与遗传基础编辑本段
雌雄异色的发育基础涉及性激素调控、色素细胞分化与基因表达差异。在鸟类中,雄性睾酮水平升高可促进类胡萝卜素色素沉积和求偶行为,而雌性雌激素可能抑制鲜艳色素的表达。在鱼类(如孔雀鱼 Poecilia reticulata)中,雄性体色受性染色体连锁基因和常染色体修饰基因共同控制,性别决定系统(XY 或 ZW)与色素基因的连锁关系影响雌雄异色的遗传结构。
近年来,基因组学研究揭示了雌雄异色的分子调控网络。例如,鸟类羽色二型性与MC1R、ASIP、TYR等色素合成基因的性别差异表达相关;表观遗传机制(如 DNA 甲基化)可能在性别特异性基因表达中发挥调控作用。此外,性拮抗选择(Sexually Antagonistic Selection)可导致性别特异性等位基因的表达,进而维持雌雄异色的遗传变异。
五、生态学意义与保护应用编辑本段
雌雄异色在生态学中具有多重意义。首先,它是物种识别和配偶选择的重要信号,影响繁殖隔离与物种形成。其次,雌雄异色程度可作为环境压力的生物指示:在捕食风险高或光照条件差的环境中,性选择信号强度可能减弱,导致雌雄异色程度降低。再次,雌雄异色与种群遗传多样性、寄生虫负载等生态因子相关,可用于评估种群健康状况。
在保护生物学中,雌雄异色物种对栖息地破碎化和人为干扰更为敏感,因为性选择依赖的视觉环境改变可能干扰配偶识别。保护实践中需考虑雌雄异色物种的性别特异性生态需求。
六、研究展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。