
多细胞性起源
一、多细胞性的定义与分类编辑本段
多细胞性(multicellularity)通常指由多个细胞组成的生物体,这些细胞通过粘附、通讯与分工形成协调的整体。依据细胞来源与分化程度,多细胞性可划分为两大类:克隆型多细胞性(clonal multicellularity)与聚集型多细胞性(aggregative multicellularity)。前者源于单个细胞反复分裂形成克隆群体,如动物、陆生植物与多数绿藻;后者由独立个体聚集而成,如盘基网柄菌(Dictyostelium discoideum)与黏细菌。进一步地,多细胞性还可按分化程度分为简单多细胞性(细胞无组织分化)与复杂多细胞性(形成组织、器官与严格的发育程序)。
据估计,多细胞性在真核生物中独立演化了不少于25次,而在原核生物中亦有零星出现(如蓝细菌丝状体)。这种多次起源表明,多细胞性的演化并非偶然,而是受若干普遍性选择压力与遗传机制驱动。
二、多细胞性的主要演化路径编辑本段
真核多细胞性的起源涉及多条路径,各路径在生态背景与机制上差异显著。
2.1 克隆型路径:动物与绿藻
动物与绿藻的多细胞性均源于细胞分裂后子细胞不分离,形成克隆群体。对领鞭虫(choanoflagellates)的研究揭示,动物多细胞性的关键前适应性状(如细胞粘附分子、胞外基质与受体酪氨酸激酶)在单细胞近亲中已存在。例如,领鞭虫基因组中含有与动物钙粘蛋白(cadherin)和凝集素相似的基因,表明细胞粘附工具早于多细胞体出现。动物多细胞性的起源可能涉及单细胞祖先在特定生态条件下(如捕食压力或悬浮取食)延长了细胞群体阶段,随后通过细胞分化获得分工优势。
绿藻中的团藻目(Volvocales)提供了从单细胞衣藻(Chlamydomonas)到多细胞团藻(Volvox)的连续过渡系列。团藻的演化涉及细胞数量增加、细胞分化(生殖细胞与体细胞分离)以及发育程序的复杂度提升。实验演化研究(如Ratcliff等,2012)利用酵母模型在实验室中再现了简单多细胞性的快速演化,表明选择压力可迅速产生细胞聚集与凋亡分工。
2.2 聚集型路径:盘基网柄菌与黏细菌
盘基网柄菌是研究聚集型多细胞性的经典模型。在饥饿条件下,细胞分泌cAMP作为趋化信号,聚集形成多细胞体(slug),最终分化为柄细胞与孢子。该过程涉及细胞命运决定、细胞粘附与程序性细胞死亡。与克隆型不同,聚集型多细胞性存在“作弊者”问题(cheater),即部分细胞不贡献柄部而直接形成孢子,这解释了为何聚集型多细胞性在演化上较克隆型少见。黏细菌(Myxobacteria)作为原核生物也表现出类似的社会性行为,其子实体形成与细胞分化机制为多细胞性的早期演化提供了线索。
2.3 其他路径:植物、真菌与红藻
陆生植物多细胞性源于绿藻祖先,其细胞壁与胞间连丝(plasmodesmata)为细胞间物质运输与信号传递提供了独特结构。真菌的多细胞性(如丝状真菌的菌丝体)涉及细胞隔膜与细胞核迁移。红藻的多细胞性则独立于绿藻与动物,其细胞间存在胞间连丝样连接。
三、多细胞性的发育与遗传基础编辑本段
多细胞性的实现依赖于一系列核心细胞功能的演化扩展,包括细胞粘附、细胞通讯、细胞周期调控、细胞凋亡与胞外基质。
3.1 细胞粘附与胞外基质
细胞粘附分子(如钙粘蛋白、整合素、凝集素)在多细胞性起源中扮演关键角色。动物钙粘蛋白家族的多样化与多细胞性的复杂化相关,而凝集素在领鞭虫中已参与细胞粘附。胞外基质(extracellular matrix, ECM)为细胞提供机械支撑与信号微环境,动物胶原蛋白与蛋白聚糖的演化出现与多细胞体的组织构建密切相关。植物细胞壁的纤维素与果胶成分同样构成多细胞性的结构基础。
3.2 细胞通讯与信号通路
细胞间通讯是多细胞性协调的基础。动物中的Notch、Wnt、Hedgehog与TGF-β等信号通路均参与细胞命运决定与组织模式形成。比较基因组学表明,这些通路的组件在单细胞近亲中已有雏形,但在多细胞体中发生基因复制与功能分化。盘基网柄菌的cAMP信号通路是聚集型多细胞性通讯的典型例子,展示了从趋化到发育协调的平滑过渡。
3.3 细胞凋亡与细胞周期调控
程序性细胞死亡(apoptosis)在多细胞性中至关重要,既用于形态塑造(如手指形成),也用于清除受损细胞。凋亡机制的演化起源可追溯至单细胞生物中用于应对压力与病毒感染的程序。细胞周期调控的演化扩展允许细胞在分裂与分化之间做出选择,从而形成稳定的多细胞体。例如,团藻体细胞的不育性与细胞周期抑制相关。
四、生态驱动因素与选择压力编辑本段
多细胞性的演化受多种生态因素驱动。首先,捕食压力是经典假说:多细胞体型增大可降低被单细胞捕食者吞噬的风险。其次,资源竞争与悬浮取食促进细胞群体形成,如领鞭虫的群体阶段可提高取食效率。第三,合作与分工带来的代谢效率提升(如固氮蓝细菌的异形胞分化)为多细胞性提供了选择优势。此外,氧气水平上升与生态位复杂化也为多细胞体的能量需求与形态创新提供了条件。
五、实验演化与合成生物学编辑本段
实验演化研究为多细胞性起源提供了直接证据。Ratcliff等(2012)利用酿酒酵母(Saccharomyces cerevisiae)在实验室中通过选择快速沉降的细胞团,在数十代内演化出具有细胞分工与凋亡的简单多细胞体。类似地,铜绿假单胞菌(Pseudomonas aeruginosa)等细菌在实验室中可演化出生物膜与细胞分化。合成生物学方法则尝试在最小基因组中构建多细胞行为,如通过工程化细胞粘附与通讯模块,为理解多细胞性的必要组件提供线索。
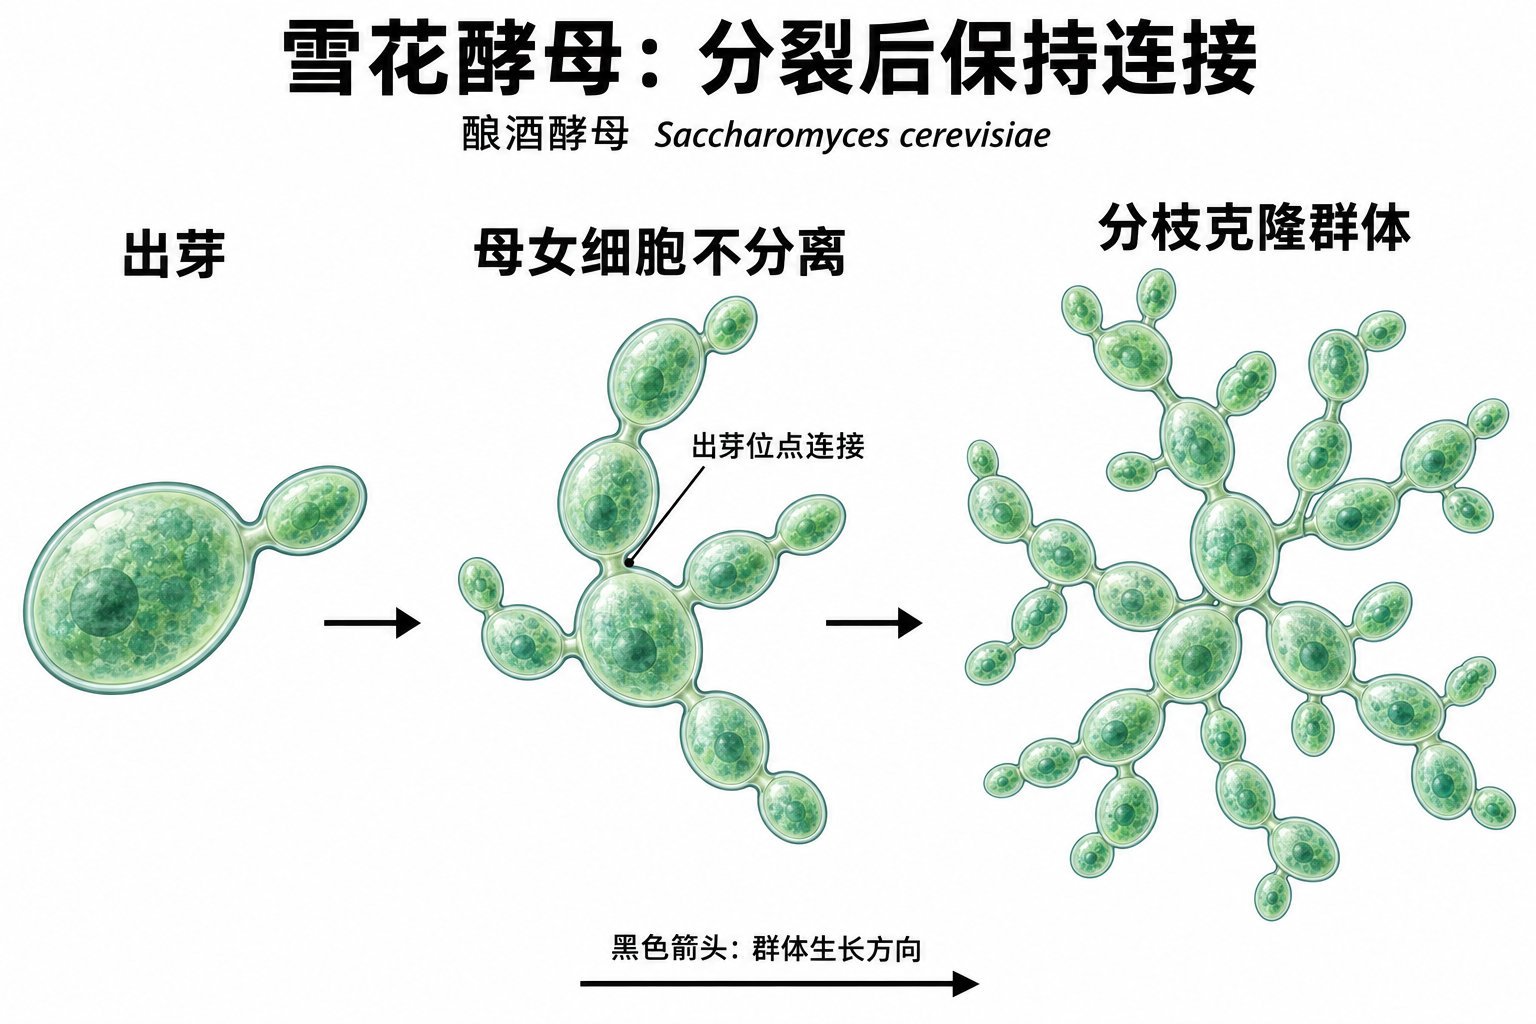 雪花酵母的女细胞在出芽后与母细胞保持连接,后续出芽使群体形成分枝状克隆结构。黑色箭头表示群体生长,引线标出母女细胞间的出芽位点连接。
六、多细胞性起源的医学与理论意义编辑本段
多细胞性起源的研究对理解癌症与衰老具有深远意义。癌症可被视为多细胞合作机制的崩溃,即细胞逃脱多细胞体的调控而回归单细胞样增殖。因此,多细胞性起源所涉及的细胞粘附、凋亡与周期调控机制,也是肿瘤抑制的核心。此外,多细胞性与衰老的演化关系密切,体细胞与生殖细胞的分离(即Weismann屏障)是多细胞性演化的关键创新,其失效与衰老相关。从理论层面,多细胞性起源为理解重大演化转变(major evolutionary transitions)提供了范例,揭示了合作、冲突与信息整合在复杂生命层次涌现中的普遍规律。
七、结论与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。