
寒武纪大爆发
一、定义与时间框架编辑本段
寒武纪大爆发(Cambrian Explosion)指寒武纪早期(约541–515 Ma)动物化石记录中门级多样性骤增的现象。其起点通常与埃迪卡拉纪–寒武纪界线附近的小壳化石组合出现大致对应,随后在纽芬兰世至第二世(Terreneuvian–Series 2)逐步扩展,并在寒武纪第三期(约518 Ma)的澄江生物群达到高峰。至苗岭世(约509 Ma)布尔吉斯页岩生物群时,多数现生动物门类已经确立。
需强调,“爆发”是相对于地质时间尺度的快速,而非瞬间事件;其过程可能持续数千万年,并包含多个辐射与灭绝幕次。
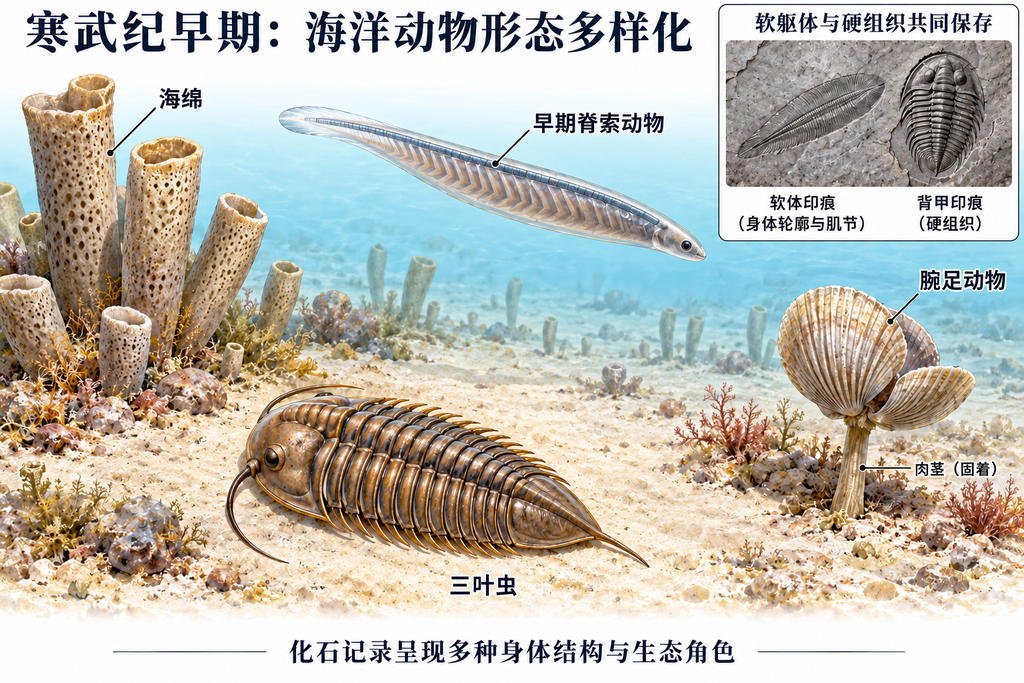 寒武纪早期海洋化石记录显示三叶虫、海绵、腕足动物和早期脊索动物等多样形态。软躯体与硬组织的保存共同揭示当时的生物结构与生态角色。
二、化石证据与特异埋藏编辑本段
寒武纪大爆发的认识建立在全球多处特异埋藏化石库(Konservat-Lagerstätten)之上。中国云南澄江生物群(约518 Ma)保存了软躯体动物、藻类及胚胎,已描述逾200种,涵盖脊索动物、节肢动物、腕足动物、刺胞动物等;加拿大布尔吉斯页岩(约508 Ma)以精细的附肢和鳃结构著称,揭示了节肢动物的早期分化。西伯利亚、格陵兰、澳大利亚等地的小壳化石与三叶虫序列则提供了生物地层框架。
化石记录显示:①骨骼化在多个谱系中独立出现(如磷酸盐质、碳酸盐质壳体);②附肢分节与关节化使运动与取食方式多样化;③视觉器官(复眼)在节肢动物中快速演化;④捕食–被捕食关系的化石证据(如钻孔、修复痕)表明生态网络复杂化。
三、动物门类的快速分化编辑本段
分子系统学与化石校准表明,多数现生动物门的分歧时间在埃迪卡拉纪晚期至寒武纪早期。寒武纪化石中已识别出脊索动物(如海口鱼、昆明鱼)、节肢动物(三叶虫、抚仙湖虫)、腕足动物、软体动物、环节动物、刺胞动物等门类的早期代表。同时,大量干群(stem-group)与奇异形态(如奇虾类、古虫动物、步甲虫类)展示了“实验性”体型构建,反映了演化尚未受到后期约束的形态空间探索。
值得注意,门级多样性在寒武纪早期迅速达到高峰,但种级多样性仍较低;所谓“爆发”更多体现在体型构建(body plan)创新而非物种数量激增。
四、成因机制:多因素协同编辑本段
寒武纪大爆发的解释是多元的,主流观点包括:
1. 环境氧含量升高:新元古代晚期至寒武纪早期大气–海洋氧化事件(如Shuram excursion)可能提高了动物有氧代谢与生物矿化的可行性,但氧浓度变化与动物辐射的精确耦合仍有争议。
2. 生态反馈与“收割者原则”:捕食压力驱动防御结构(壳、刺)与运动能力演化,形成正反馈,加速多样化。
3. 发育调控基因与基因调控网络革新:Hox基因簇、Pax6等调控基因在动物共同祖先中已存在,寒武纪期间顺式调控元件与信号通路的复杂化使体型构建可塑性增强,为形态创新提供发育基础。
4. 遗传工具箱的“深度同源性”:现生动物共享一套发育调控基因,寒武纪辐射更多是调控网络的重塑而非新基因的大量产生。
5. 地质与埋藏条件:寒武纪广泛的浅海碳酸盐台地与磷酸盐化、黏土矿物替代等埋藏条件有利于软躯体保存,提高了化石记录分辨率,部分“爆发”信号可能受保存偏差影响。
五、争议与再认识编辑本段
“爆发”的真实性与幅度长期争论。分子钟研究提示部分动物门的分歧时间早于寒武纪(“分子–化石差异”),但化石记录仍显示门级体型构建在寒武纪早期集中出现。此外,埃迪卡拉生物群与寒武纪动物之间的演化连续性、小壳化石的分类归属、以及“爆发”是否仅为保存窗口效应,均是活跃的研究前沿。总体而言,寒武纪大爆发被视为环境机会、生态互动与发育遗传革新共同作用的演化辐射事件,而非单一原因所致。
六、科学意义编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。