
分节段RNA病毒
一、定义与分类编辑本段
分节段RNA病毒(segmented RNA virus)是一类基因组由两个或多个独立RNA片段组成的RNA病毒。每个片段通常编码一个或少数几个蛋白质,且所有片段被共同包装于同一个病毒粒子中。根据巴尔的摩分类法,分节段RNA病毒可属于正链RNA病毒(如豇豆花叶病毒科)、负链RNA病毒(如正黏病毒科、布尼亚病毒目、沙粒病毒科)以及双链RNA病毒(如呼肠孤病毒科)。值得注意的是,分节段现象在负链RNA病毒中尤为突出,许多对人类健康构成重大威胁的病原体均属此类。
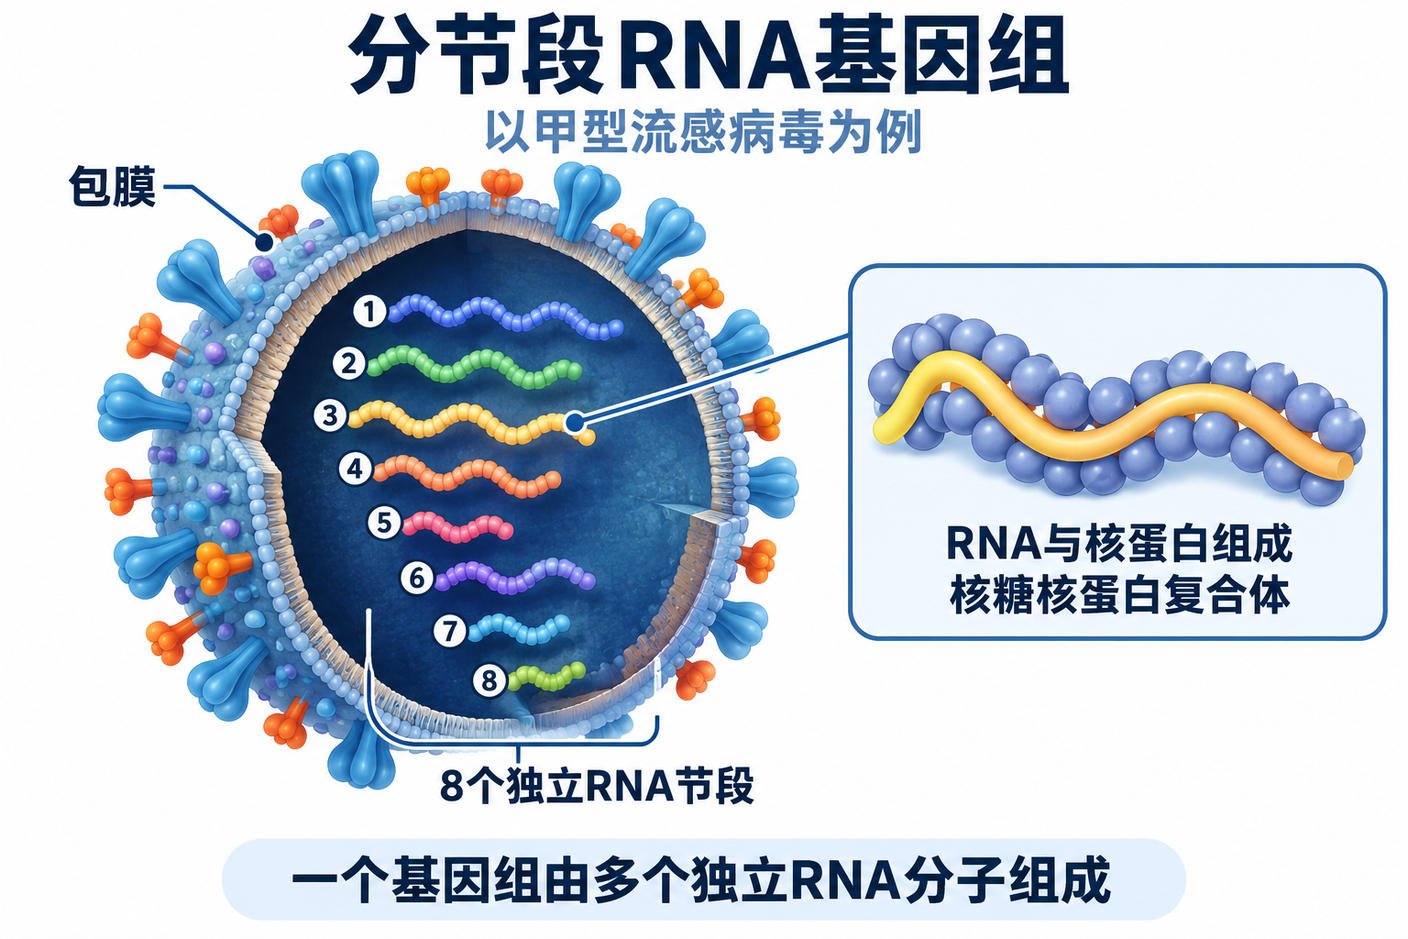 甲型流感病毒的基因组由8个独立RNA节段组成,RNA与核蛋白结合成核糖核蛋白复合体,位于包膜内。
常见的分节段RNA病毒包括:正黏病毒科的流感病毒(8个节段)、布尼亚病毒目的汉坦病毒和克里米亚-刚果出血热病毒(3个节段)、沙粒病毒科的拉沙病毒(2个节段)、呼肠孤病毒科的轮状病毒(11个节段)以及丝状病毒科的埃博拉病毒(1个节段,但通常不称为分节段病毒,因其仅一个节段)。
二、基因组结构与包装机制编辑本段
分节段RNA病毒的基因组通常为线性RNA,每个片段具有保守的末端序列,这些序列作为包装信号和复制启动子。病毒粒子内的RNA片段并非随机包装,而是通过特定的RNA- RNA相互作用和蛋白质介导的机制实现选择性包装。例如,流感病毒通过各节段5'和3'端的部分互补序列形成锅柄结构,并依赖核蛋白(NP)和聚合酶复合体(PB1、PB2、PA)进行包装。布尼亚病毒则利用其核衣壳蛋白(N)和RNA依赖的RNA聚合酶(L)协同完成包装。
分节段基因组的包装策略主要有两种:一是“选择性包装”,即病毒粒子仅包装一套完整的病毒RNA片段;二是“随机包装”,即病毒粒子可能包装任意组合的片段,但只有包含全部片段的粒子才具有感染性。呼肠孤病毒采用前一种策略,而流感病毒则被认为采取一种半选择性的机制。
三、复制与转录机制编辑本段
分节段RNA病毒的复制和转录过程因病毒类型而异。对于负链RNA病毒,病毒粒子携带RNA依赖的RNA聚合酶,进入宿主细胞后首先转录出mRNA,进而翻译病毒蛋白,随后在病毒蛋白积累后转向复制,合成正链RNA(抗原基因组)和负链RNA(子代基因组)。正链RNA病毒(如豇豆花叶病毒)则直接以基因组RNA作为mRNA翻译蛋白,再通过负链中间体复制子代基因组。双链RNA病毒(如呼肠孤病毒)的转录发生在病毒粒子内部,释放mRNA至细胞质翻译。
由于每个节段独立复制,不同节段可能以不同效率扩增,导致子代病毒中节段比例的变化。这种不对称复制可能影响病毒 fitness 和致病性。
四、基因重配及其分子基础编辑本段
基因重配(reassortment)是分节段RNA病毒特有的遗传重组机制,指不同病毒株(或不同亚型)感染同一宿主细胞时,它们的节段RNA发生交换,产生具有新基因组合的子代病毒。这一过程依赖于两个关键条件:一是混合感染,即同一细胞被两种以上病毒株感染;二是节段包装机制允许异源节段被有效包装。
分子层面,重配的发生频率受节段间包装信号的兼容性影响。同种病毒的不同株之间由于包装信号相似,重配频率较高;而不同种病毒间(如流感病毒不同亚型)则可能因包装信号差异而受限。重配可导致病毒抗原性转变(antigenic shift),如流感病毒H1N1与H3N2重配产生新亚型,从而引发大流行。此外,重配还可使病毒获得新的宿主范围或抗药性。
五、进化意义编辑本段
分节段基因组为病毒提供了独特的进化优势。首先,重配能够快速产生基因组合多样化的后代,加速适应性进化。例如,甲型流感病毒通过重配不断产生新的流行株,逃避人群免疫。其次,不同节段可能承受不同的选择压力,导致节段间进化速率差异。例如,流感病毒血凝素(HA)和神经氨酸酶(NA)节段受免疫选择压力大,进化速度快,而内部基因(如PB2、NP)相对保守。然而,分节段也带来代价:每个节段需独立复制和包装,增加了复制错误和包装失败的风险。
此外,分节段病毒的重配可能打破共适应基因组合,产生低适应度的病毒,但自然选择会筛选出优势组合。因此,重配在病毒种群中维持了遗传多样性的平衡。
六、流行病学与公共卫生意义编辑本段
分节段RNA病毒在人类和动物疾病中占据重要地位。流感病毒每年引起季节性流行,并偶发大流行(如1918年H1N1、2009年H1N1)。布尼亚病毒目的汉坦病毒导致肾综合征出血热,克里米亚-刚果出血热病毒病死率高。沙粒病毒科的拉沙病毒在西非引起地方性流行。轮状病毒是婴幼儿腹泻的主要病原。这些病毒的防控依赖于疫苗和抗病毒药物,但由于重配和突变,疫苗株需定期更新,抗药性也易出现。
在动物中,分节段RNA病毒如蓝舌病毒(呼肠孤病毒科)和禽流感病毒对畜牧业造成巨大经济损失。重配可能产生跨种传播的新毒株,如禽流感病毒重配后感染人类,构成大流行威胁。
七、研究技术编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。