
背神经索
一、定义与基本概念编辑本段
背神经索(dorsal nerve cord)是脊索动物门(Chordata)胚胎发育过程中位于身体背侧、由外胚层分化而来的管状中枢神经系统结构。它与脊索(notochord)、咽鳃裂(pharyngeal slits)以及肛后尾(post-anal tail)共同构成脊索动物的四大鉴别特征。在胚胎发育过程中,背神经索最初表现为神经板(neural plate),随后通过神经胚形成(neurulation)过程折叠、闭合为神经管(neural tube)。神经管的前端膨大并分化为脑,后端则发育为脊髓。因此,背神经索是中枢神经系统(脑和脊髓)的胚胎前体,也是脊椎动物神经系统发育的核心结构。
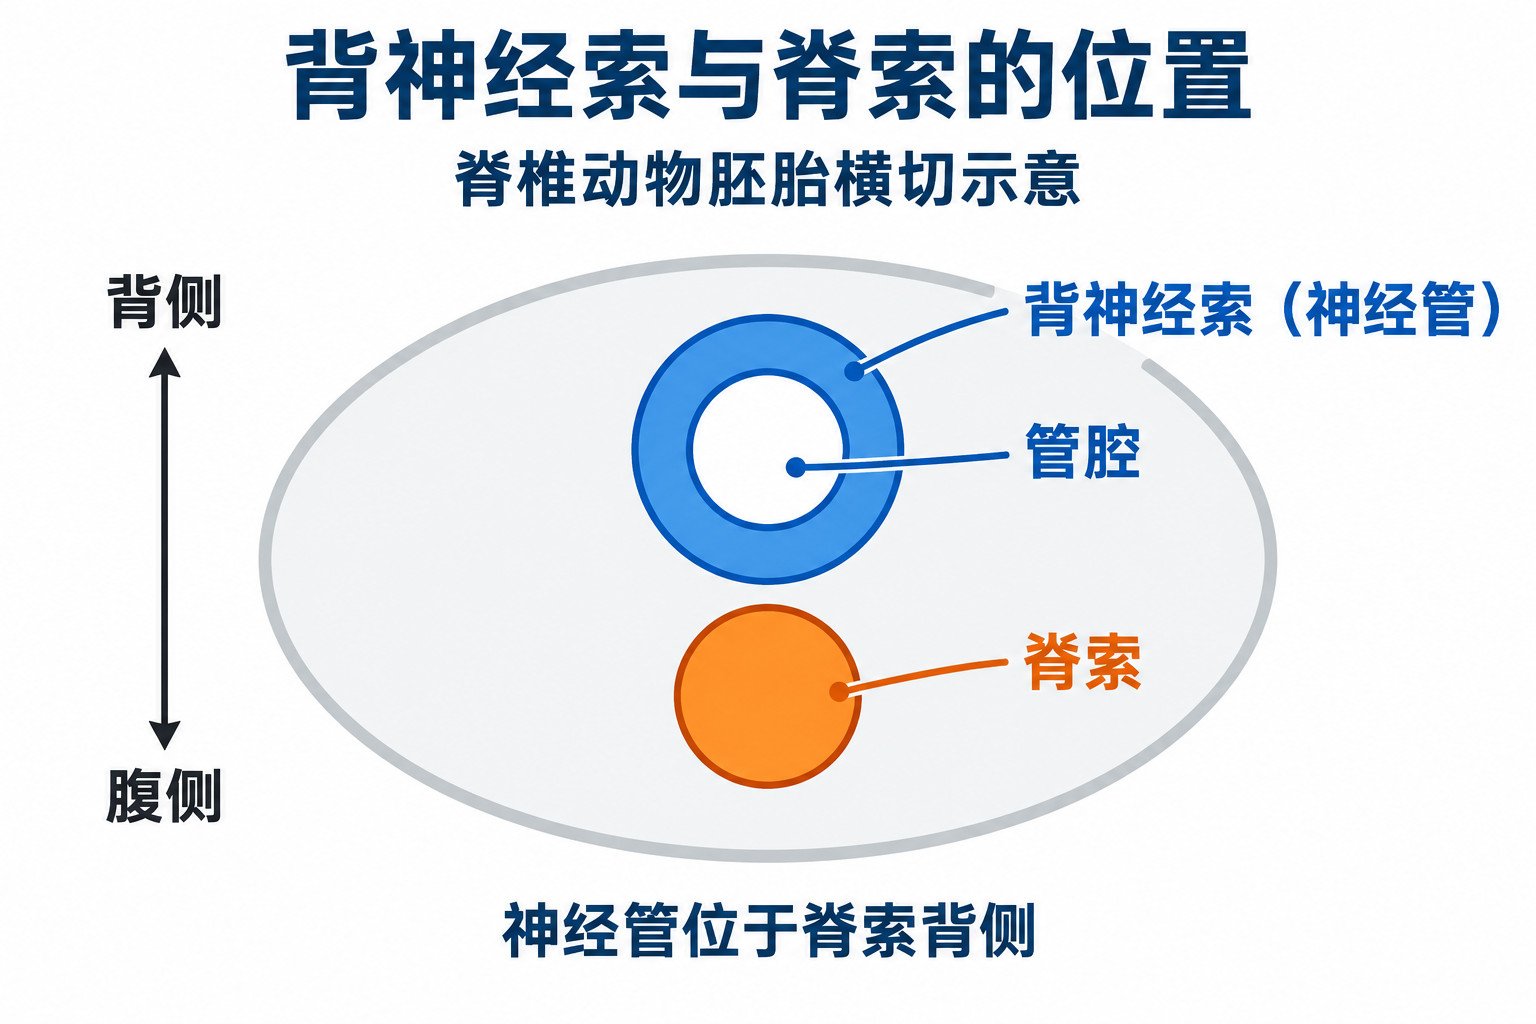 背神经索在脊椎动物胚胎中形成中空的神经管,位于脊索的背侧。图中蓝色圆环及其白色管腔表示神经管,橙色实心圆表示脊索。
需要指出的是,背神经索并非单一成体结构,而是胚胎期结构的统称。在成体中,该结构已分化为脑和脊髓,但在胚胎学与比较解剖学文献中,"背神经索"一词仍被广泛用于描述脊索动物胚胎背侧的中空神经管。与无脊椎动物(如节肢动物、环节动物)位于腹侧的实心神经索形成鲜明对比,背神经索的中空管状结构及背侧位置是脊索动物的重要创新。
二、胚胎发生过程编辑本段
背神经索的形成是一个多阶段、精确调控的发育过程,主要包括以下几个阶段:
1. 神经板诱导(neural induction):在原肠胚形成后,脊索中胚层和底索(floor plate)分泌信号分子,诱导其背侧外胚层细胞分化为神经板。这一过程依赖于BMP信号的抑制、FGF信号以及Wnt信号的拮抗。经典模型认为,脊索分泌的Noggin、Chordin和Follistatin等BMP拮抗剂是神经诱导的关键因子。
2. 神经胚形成(neurulation):神经板细胞发生形态变化(如 apical constriction),使神经板折叠形成神经沟(neural groove)。随后,神经褶(neural folds)在中线融合,形成神经管。融合过程涉及细胞黏附分子(如N-cadherin)和细胞骨架的动态重塑。神经管闭合起自颈区,向头尾两端延伸,形成前神经孔和后神经孔。前神经孔闭合失败可导致无脑畸形(anencephaly),后神经孔闭合失败则导致脊柱裂(spina bifida)。
3. 神经管区域化(patterning):神经管闭合后,沿背腹轴和前后轴进行区域化。腹侧信号由Shh(Sonic hedgehog)介导,背侧信号由BMP和Wnt介导,二者形成浓度梯度,指导神经管不同区域的细胞命运决定。前后轴则受Hox基因、Otx2、Krox20等转录因子调控,最终形成脑的各个区域和脊髓的节段性结构。
4. 神经管衍生结构:神经管最终分化为脑(前脑、中脑、后脑)和脊髓。神经管腔演变为脑室系统和脊髓中央管。神经管壁的细胞分化为神经元和胶质细胞。此外,神经嵴细胞(neural crest cells)从神经管背侧迁移,形成周围神经系统、色素细胞、颅面软骨等多种结构。
三、分子调控机制编辑本段
背神经索的发育受到高度保守的分子网络调控,主要信号通路包括:
BMP信号通路:BMP信号在非神经外胚层中维持表皮命运,而在神经板区域被拮抗。脊索分泌的Noggin、Chordin等BMP拮抗剂是神经诱导的关键。BMP信号的梯度也参与神经管背腹轴的模式形成。
FGF信号通路:FGF信号在神经诱导中发挥重要作用,可抑制BMP信号并促进神经命运。FGF8在中脑-后脑边界(MHB)表达,参与前后轴的模式形成。
Wnt信号通路:Wnt信号在神经管前后轴模式形成中发挥重要作用。Wnt信号抑制前脑命运,促进后脑和脊髓命运。Wnt1和Wnt3a在神经管背侧表达,参与背侧模式形成。
Shh信号通路:Shh由脊索和底索分泌,形成腹侧至背侧的浓度梯度,指导神经管腹侧细胞命运(如运动神经元和底板细胞)。Shh信号通路异常与多种发育缺陷相关。
Notch信号通路:Notch信号参与神经管细胞的分化与增殖平衡,影响神经元与胶质细胞的比例。
四、比较解剖学与进化意义编辑本段
背神经索是脊索动物门的关键创新,在比较解剖学上具有重要地位。无脊椎动物(如节肢动物、环节动物)的神经索通常位于腹侧且为实心结构,而脊索动物的背神经索位于背侧且呈中空管状。这一位置与结构的差异被称为“背腹翻转”(dorsoventral inversion)假说,即脊索动物与无脊椎动物在背腹轴上的信号通路(BMP/Chordin)作用相反,导致神经系统位置翻转。
在脊索动物门内部,背神经索的结构也存在差异:头索动物(如文昌鱼)的背神经索无明显前端膨大,仅具轻微脑泡;尾索动物(如海鞘)的幼体具背神经索,但变态后消失;脊椎动物的背神经索前端高度发达,形成复杂的脑。这些差异反映了神经系统在进化过程中的复杂性增加。
从进化发育生物学(evo-devo)角度看,背神经索的形成机制在脊索动物中高度保守,相关基因(如Shh、BMP、FGF、Wnt等)在果蝇等无脊椎动物中也有同源基因,但其表达模式不同。这表明背神经索的进化源于对已有基因调控网络的重新部署。
五、研究方法编辑本段
背神经索的研究方法涵盖胚胎学、分子生物学、遗传学和影像学等多个层面:
胚胎学方法:原位杂交、免疫组化、活体成像(如光片显微镜)用于观察神经管形成过程。鸡胚、蛙胚(非洲爪蟾)、斑马鱼和小鼠是常用的模式生物。
遗传学方法:基因敲除、敲低(如Morpholino)、过表达以及CRISPR/Cas9基因编辑技术用于研究特定基因在背神经索发育中的功能。斑马鱼突变体筛选(如omics)揭示了大量神经管发育相关基因。
分子生物学方法:转录组学、单细胞RNA测序(scRNA-seq)和染色质免疫沉淀测序(ChIP-seq)用于解析神经管发育的分子网络。
六、临床关联与疾病编辑本段
背神经索发育异常可导致严重的先天性疾病,统称为神经管缺陷(neural tube defects, NTDs)。常见的NTDs包括:
无脑畸形(anencephaly):前神经孔闭合失败,导致大脑半球缺失,通常致死。
脊柱裂(spina bifida):后神经孔闭合失败,严重程度不一,轻者仅椎弓缺损,重者脊膜膨出或脊髓脊膜膨出,导致下肢瘫痪和大小便功能障碍。
脑膨出(encephalocele):颅骨缺损伴脑组织膨出。
叶酸(folic acid)补充已被证明可显著降低NTDs的发生风险,其机制可能与一碳代谢和DNA甲基化有关。此外,NTDs还与遗传因素(如VANGL1、MTHFR基因突变)和环境因素(如糖尿病、肥胖、药物暴露)相关。
在成人中,背神经索相关结构(如脊髓)的损伤可导致严重神经功能障碍。脊髓损伤的研究也借鉴了背神经索发育的分子机制,以探索神经再生策略。
七、总结与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。