
感觉神经末梢
一、定义与概述编辑本段
感觉神经末梢(sensory nerve endings)是感觉神经元周围突的终末部分,广泛分布于皮肤、黏膜、肌肉、肌腱、关节及内脏器官中。这些特化结构将各种形式的能量(机械能、热能、化学能等)转换为神经冲动(动作电位),从而启动感觉传入过程。感觉神经末梢是机体感知外部世界和监测内环境状态的第一道关口,其功能特性决定了感觉系统的灵敏度和分辨能力。
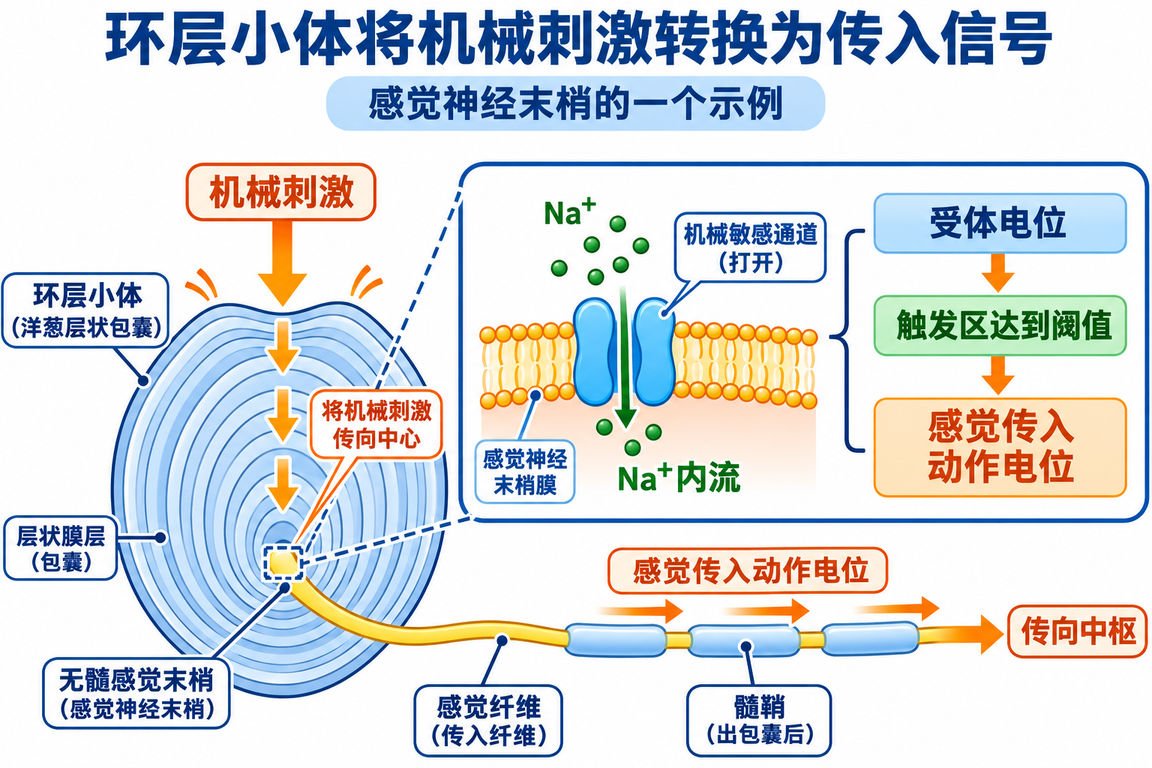 机械刺激经环层小体包囊传至感觉末梢,机械敏感通道开放产生受体电位;触发区达到阈值后,动作电位沿传入纤维传向中枢。
从组织学角度,感觉神经末梢由感觉神经元的周围突末梢与周围的非神经组织(如施万细胞、胶原纤维、被囊等)共同构成。根据末梢是否具有特殊的被囊结构,分为游离神经末梢(free nerve endings)和有被囊神经末梢(encapsulated nerve endings)两大类。游离神经末梢仅由裸露的轴突终末分支构成,主要分布于表皮、角膜、牙髓及内脏器官,多数为伤害性感受器或温度感受器;有被囊神经末梢则被特化的施万细胞或结缔组织被囊包裹,包括触觉小体、环层小体、鲁菲尼小体等,主要参与触觉、压觉和本体感觉。
二、胚胎发生与发育编辑本段
感觉神经末梢来源于神经嵴细胞衍生的感觉神经元。在胚胎发育过程中,神经嵴细胞迁移并分化为背根神经节(DRG)和三叉神经节中的感觉神经元。这些神经元的周围突向靶组织(如皮肤、肌肉)生长,并与靶组织中的特定细胞(如梅克尔细胞、毛囊等)建立联系,最终形成形态各异的感觉末梢。轴突导向分子(如神经营养因子、Slit/Robo、Semaphorin等)在感觉末梢的靶向分布和终末分化中起关键作用。例如,脑源性神经营养因子(BDNF)和神经营养因子3(NT-3)分别支持不同亚群感觉神经元的存活和表型维持。此外,感觉末梢的密度和形态可受靶组织来源的信号调控,表现出显著的可塑性。
三、分类与形态学特征编辑本段
3.1 游离神经末梢
游离神经末梢是结构最简单的感觉末梢,由无髓或薄髓纤维的轴突终末反复分支形成,末梢仅被施万细胞不完全包裹或完全裸露。根据其分布的层次和功能,可进一步分为:
(1)表皮内游离末梢:分布在表皮基底层及棘层,包括伤害性感受器和温度感受器。这类末梢表达多种离子通道(如TRPV1、TRPM8、Nav1.7等),对机械刺激、高温、低pH及化学刺激敏感。
(2)毛囊周围末梢:缠绕在毛囊周围的传入纤维末梢,属于机械感受器,对毛发的弯曲敏感。
(3)梅克尔盘:与表皮基底层的梅克尔细胞形成突触样连接,参与精细触觉分辨,其机械转导依赖于Piezo2通道。
3.2 有被囊神经末梢
有被囊神经末梢具有特化的被囊结构,主要包括以下几种:
(1)触觉小体(Meissner小体):分布于真皮乳头层,尤其手指、手掌和足底的无毛皮肤中密度最高。呈椭圆形,由多层施万细胞形成的横置板层包绕轴突终末。触觉小体对低频振动(约10–50 Hz)和皮肤局部的动态变形敏感,参与精细触觉的识别。
(2)环层小体(Pacinian小体):分布于真皮深层、皮下组织、肠系膜及关节囊等处,体积较大(直径可达1–2 mm)。由数十层同心圆排列的施万细胞板层构成,中心为轴突终末。环层小体是快速适应机械感受器,对高频振动(约200–300 Hz)和深部压力敏感,在振动觉和本体感觉中起重要作用。
(3)鲁菲尼小体(Ruffini小体):分布于真皮深层及关节囊,被囊较薄,轴突终末呈树枝状分支,与胶原纤维束交织。鲁菲尼小体属于慢适应机械感受器,对持续的压力和皮肤牵拉敏感,参与本体感觉和关节位置觉。
(4)肌梭和腱器官:肌梭(muscle spindle)位于骨骼肌内,由梭内肌纤维和感觉末梢组成,感受肌肉长度的变化和牵拉速度;腱器官(Golgi tendon organ)位于肌腱与肌腹交界处,感受肌肉张力变化。两者均为本体感觉的重要感受器。
四、分子转导机制编辑本段
感觉神经末梢的转导机制是当前神经科学的研究热点。不同类型的末梢表达特定的离子通道和受体,实现刺激的特异性识别。
机械转导:Piezo2通道是哺乳动物机械感受器的主要转导分子,在梅克尔盘、触觉小体、环层小体和肌梭中均有表达。Piezo2基因突变可导致触觉和本体感觉严重缺陷。此外,TRPV4、ASIC等通道也参与某些机械感受过程。
温度转导:TRP通道家族成员在温度感受中起核心作用。TRPV1(>43°C)、TRPV2(>52°C)介导热痛觉;TRPM8(<28°C)介导冷觉;TRPA1参与有害冷刺激和化学刺激的感知。
化学转导:游离神经末梢表达多种化学敏感通道和受体,如ASIC(酸敏感离子通道)、P2X(ATP门控通道)以及多种G蛋白偶联受体(如组胺受体、缓激肽受体、前列腺素受体),参与炎症痛和瘙痒的生成。
伤害性转导:伤害性感受器(nociceptor)的末梢整合多种离子通道的活性,包括Nav1.7、Nav1.8、Nav1.9等电压门控钠通道,这些通道的异常表达或功能改变与神经病理性疼痛密切相关。
五、生理功能与感觉编码编辑本段
感觉神经末梢通过频率编码和群体编码传递刺激信息。刺激强度由动作电位的发放频率和激活的末梢数量共同编码。此外,末梢的适应特性(快适应或慢适应)决定了其对动态或静态刺激的敏感性。快适应末梢(如环层小体、触觉小体)主要检测刺激的变化,慢适应末梢(如鲁菲尼小体、梅克尔盘)则持续报告刺激的存在。中枢神经系统通过突触整合和并行通路进一步处理这些信息,形成复杂的感觉体验。
近年来,单细胞转录组学揭示了感觉神经元及其末梢的分子多样性,不同亚群的末梢在基因表达、形态和生理特性上存在显著差异,这为理解感觉编码的精细机制提供了新的框架。
六、病理与临床意义编辑本段
感觉神经末梢的损伤或功能障碍可引起多种临床症状。周围神经病变(如糖尿病性神经病、化疗诱导的神经病)常首先累及远端感觉末梢,导致感觉减退、异常性疼痛和痛觉过敏。此外,感觉末梢的异常兴奋是神经病理性疼痛的重要机制,涉及异位放电和中枢敏化。在皮肤疾病中,感觉末梢的密度和功能改变与瘙痒、银屑病等相关。临床上,皮肤活检联合免疫组化(如PGP9.5标记)可评估表皮内神经纤维密度,用于诊断小纤维神经病。针对感觉末梢特异性离子通道(如Nav1.7、TRPV1)的药物研发是疼痛治疗的重要方向。
七、研究进展与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。