
感觉神经元
定义与分类地位编辑本段
感觉神经元(sensory neuron)又称传入神经元(afferent neuron),是专门负责感受机体内外环境变化并将信息转换为神经电信号,进而传向中枢神经系统的一类神经元。它与运动神经元、中间神经元共同构成神经系统的基本功能单元。按照信息流向,感觉神经元属于传入通路的第一级神经元;在脊髓和脑干内,第二级、第三级神经元继续接力,最终将信息传递至丘脑和大脑皮层,形成感觉知觉。
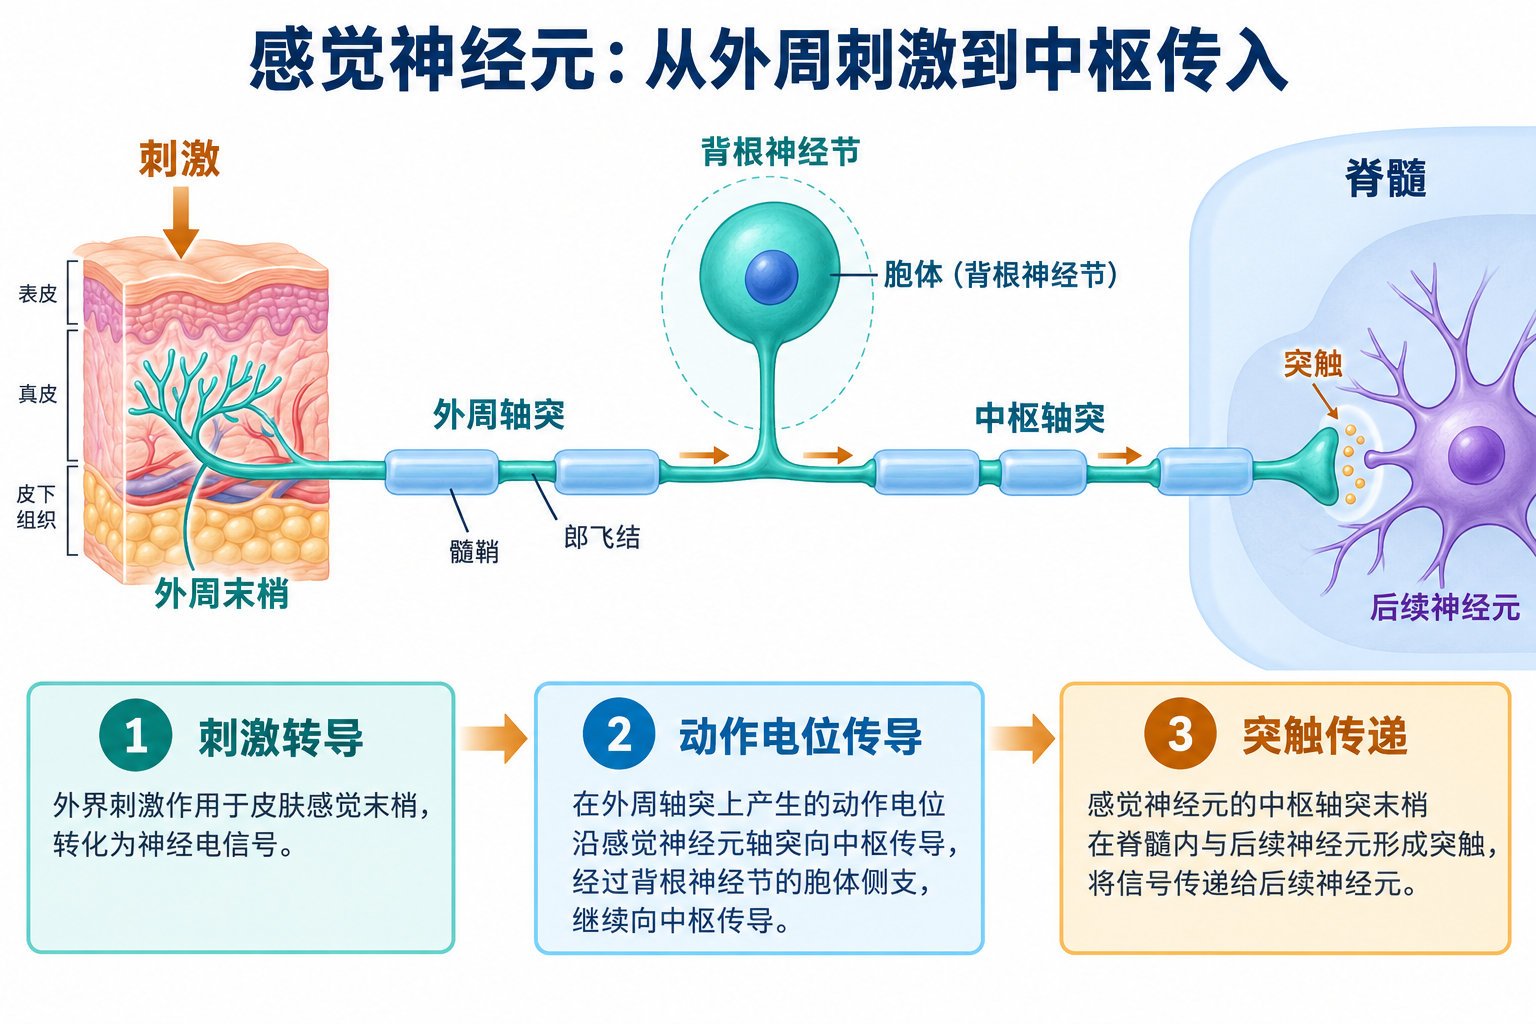 背根神经节感觉神经元示意图:外周末梢将刺激转为电信号,动作电位沿外周轴突经T形分叉传入中枢轴突,在脊髓内通过突触传给后续神经元。胞体位于主传导路径的侧支上。点击查看原图。
在分类学与解剖学上,感觉神经元主要位于背根神经节(dorsal root ganglion, DRG)、三叉神经节(trigeminal ganglion, TG)以及面神经、舌咽神经、迷走神经等颅神经的感觉神经节。这些神经节内的神经元在胚胎发育上来源于神经嵴和颅感觉基板,属于假单极神经元:其胞体发出一个短的突起,随后分为外周突和中枢突。外周突与皮肤、肌肉、关节、内脏等处的感受器相连,中枢突则进入脊髓后角或脑干感觉核团,与第二级神经元形成突触。
形态结构与超微特征编辑本段
典型的感觉神经元胞体呈圆形或卵圆形,直径从十几微米到上百微米不等。胞体被卫星胶质细胞包围,形成神经节内的结构支持与代谢屏障。胞质内含丰富的粗面内质网、游离核糖体和线粒体,提示其具有较高的蛋白质合成和能量代谢需求。感觉神经元的轴突可被施万细胞包裹形成髓鞘,也可无髓鞘。髓鞘厚度、轴突直径和朗飞结间距共同决定动作电位的传导速度。
根据Erlanger和Gasser的分类,感觉纤维可分为Aα、Aβ、Aδ和C类。Aα纤维最粗,传导速度可达80–120 m/s,主要传递本体感觉和运动信息;Aβ纤维传导速度约35–75 m/s,负责触压觉和振动觉;Aδ纤维为薄髓纤维,传导速度约5–30 m/s,与快速定位的锐痛和冷觉有关;C类纤维无髓鞘,传导速度约0.5–2 m/s,参与钝痛、温觉、痒觉和内脏感觉。不同纤维类型的选择性损伤会导致分离性感觉障碍,例如糖尿病周围神经病常较早累及Aδ和C纤维,而脊髓后索病变则优先损害Aβ及本体感觉纤维。
分子感受机制编辑本段
感觉神经元对外界刺激的识别依赖多种离子通道和受体。机械刺激可由PIEZO1、PIEZO2等离子通道感知,其中PIEZO2在轻触觉和本体感觉中起关键作用。温度与化学刺激主要由瞬时受体电位(transient receptor potential, TRP)通道家族介导,例如TRPV1可被辣椒素、酸和43 ℃以上热刺激激活,TRPM8参与冷觉和薄荷醇感受,TRPA1则与芥末油、活性氧和炎症介质相关。酸性环境可激活酸敏感离子通道(ASIC),而ATP、缓激肽、前列腺素、神经生长因子等炎症介质可通过G蛋白偶联受体和下游激酶级联调节通道的敏感性和表达水平。
感觉神经元还具有显著的外周敏化和中枢敏化特性。在组织损伤或炎症时,伤害性感受器阈值降低、自发放电增加,导致痛觉过敏和异常性疼痛。转录组研究发现,DRG神经元可分为多种分子亚型,其差异表达基因涉及离子通道、神经肽、G蛋白偶联受体和转录因子。例如,表达降钙素基因相关肽(CGRP)和P物质的感觉神经元多与痛觉和神经源性炎症有关;表达MrgprD、MrgprA3的亚群分别参与机械痛和瘙痒。单细胞测序技术进一步揭示了感觉神经元在病理状态下的亚群重编程和基因表达动态。
发育与可塑性编辑本段
感觉神经元的发生受神经嵴细胞的迁移、分化与神经营养因子信号调控。TrkA、TrkB、TrkC分别介导神经生长因子(NGF)、脑源性神经营养因子(BDNF)和神经营养因子-3(NT-3)的信号,决定神经元存活、轴突生长和表型维持。出生后,感觉神经元的靶组织支配关系仍具有可塑性;成年后,在神经损伤、炎症或慢性应激条件下,其转录组、通道功能和突触连接均可发生长期改变。这种可塑性既是神经修复的基础,也是慢性疼痛和感觉异常的重要机制。
生理功能与临床意义编辑本段
感觉神经元承担多种模态的信息编码:机械感受器负责触压、振动和本体感觉;温度感受器区分冷热;伤害性感受器检测组织损伤性刺激;内脏感受器监测内脏张力、化学环境和炎症。刺激强度通常以动作电位频率和激活神经元数量进行编码,而刺激类型则由被激活的神经元亚型和中枢投射通路决定。这种“标记线”原则使大脑能够区分疼痛、触觉和温度等不同感觉。
在临床上,感觉神经元病变可导致感觉减退、麻木、疼痛、瘙痒和感觉异常。糖尿病周围神经病、化疗诱导的周围神经病、带状疱疹后神经痛、三叉神经痛和复杂性区域疼痛综合征均与感觉神经元及其通路异常有关。药物研发中,TRPV1拮抗剂、Nav1.7/Nav1.8阻断剂、CGRP单克隆抗体、NGF抑制剂等均以感觉神经元为靶点。此外,鞘内药物输注、脊髓电刺激、背根神经节刺激和基因治疗等神经调控策略,也在难治性疼痛和感觉功能障碍中显示出潜力。
研究技术与未来方向编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。