
神经逆向运输
一、概念与发现简史编辑本段
神经逆向运输是指神经元轴突内物质沿微管系统由轴突末梢向胞体方向进行的主动运输过程。与顺向运输(anterograde transport)相对,逆向运输将神经营养因子、信号内体、病毒、毒素、损伤信号及细胞器碎片等逆向运回细胞体。该现象最早在20世纪60年代通过放射性同位素标记实验被观察到:将125I标记的神经生长因子(NGF)注入外周神经末梢后,可在交感神经元胞体检测到放射性积累,提示存在逆向运输。此后,利用辣根过氧化物酶(HRP)和荧光示踪技术逐步揭示了其动力学特征和分子基础。
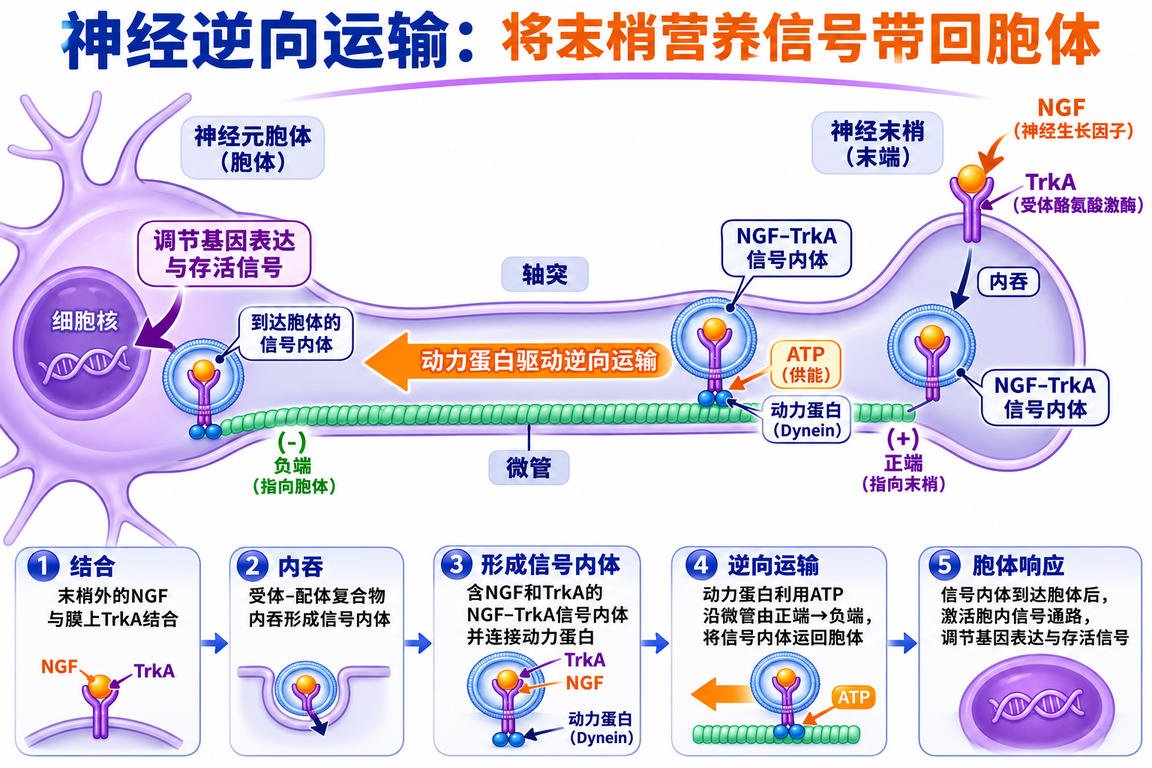 末梢NGF与TrkA结合并被内吞,形成信号内体;动力蛋白利用ATP沿微管向负端运输,将信号带回胞体。
二、分子机制编辑本段
逆向运输的分子基础是微管、马达蛋白及适配器复合物的协同作用。轴突微管具有极性:正端朝向轴突末梢,负端朝向胞体。逆向运输由细胞质动力蛋白(cytoplasmic dynein,一种AAA+ ATP酶)驱动,其沿微管负端移动。Dynein需与dynactin复合物结合才能高效运输大型货物,dynactin中的p150Glued亚基可增强dynein与微管的亲和力。此外,多种货物适配器如BICD2、Hook蛋白、JIP3等介导dynein与特定囊泡或信号内体的连接。
逆向运输具有快速(约50-200 mm/天)和慢速(约2-8 mm/天)两种组分,前者主要运输膜性细胞器和信号内体,后者主要运输胞质蛋白。运输过程受微管修饰(如乙酰化、去酪氨酸化)和GTP酶(如Rab)调控。近年研究发现,逆向运输货物常与顺向运输马达(kinesin)共存于同一囊泡,通过“马达切换”机制实现方向转换,其调控异常与多种神经疾病相关。
三、生理功能编辑本段
逆向运输在神经元生理中具有多重功能:
1. 神经营养信号转导:靶组织分泌的NGF、BDNF等神经营养因子与轴突末梢受体(Trk、p75NTR)结合后,形成信号内体逆向运输至胞体,激活CREB等转录因子,调控神经元存活和基因表达。这一过程是“神经营养假说”的核心。
2. 损伤信号传递:轴突损伤后,逆向运输将损伤信号(如钙离子、cAMP、导入的荧光染料)传至胞体,触发再生相关基因程序或细胞凋亡。
四、病理意义编辑本段
逆向运输障碍与多种神经系统疾病密切相关:
1. 肌萎缩侧索硬化(ALS):SOD1、TDP-43等突变可干扰dynein-dynactin功能,导致逆向运输效率下降,轴突末端营养支持不足,运动神经元退变。
2. 脊髓性肌萎缩(SMA):SMN蛋白缺失影响snRNP的轴突运输,逆向运输受损导致运动神经元特异性凋亡。
3. 阿尔茨海默病:Aβ和tau病理可破坏微管稳定性,损害逆向运输,促进轴突病变。
4. 病毒与毒素侵袭:狂犬病毒、单纯疱疹病毒、破伤风毒素和蓖麻毒素等利用逆向运输进入中枢神经系统,是重要的神经侵袭机制。
五、研究方法编辑本段
逆向运输研究常用技术包括:放射性同位素示踪(如125I-NGF)、荧光标记(如DiI、Fluoro-Gold)、活细胞成像(表达荧光标记的dynein或货物蛋白)、微流控腔室(分离轴突与胞体,精确评估运输方向)、遗传操作(dynactin突变、dynein敲低)及蛋白质组学(分离逆向运输囊泡进行质谱分析)。近年来,冷冻电镜和单分子追踪技术进一步揭示了dynein-dynactin复合物的动态构象。
六、结语与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。