
跨代可塑性
定义与概念界定编辑本段
跨代可塑性(transgenerational plasticity, TGP)指亲代环境经历诱导的表型变化传递给后代,使后代在相似或可预测环境中获得适应性优势的现象。严格意义上,跨代效应需排除直接暴露于后代的影响:在哺乳动物中,若环境作用于孕前亲代,则F1和F2代可能直接暴露于子宫内环境,F3代及以后才构成真正的跨代传递;而在鱼类、昆虫和植物中,因胚胎发育独立于母体,跨代传递的代际界定相对简单。TGP与亲代效应(parental effect)和发育可塑性(developmental plasticity)密切相关但不等同:前者强调环境信息跨代传递,后者强调个体在发育过程中对环境做出响应。
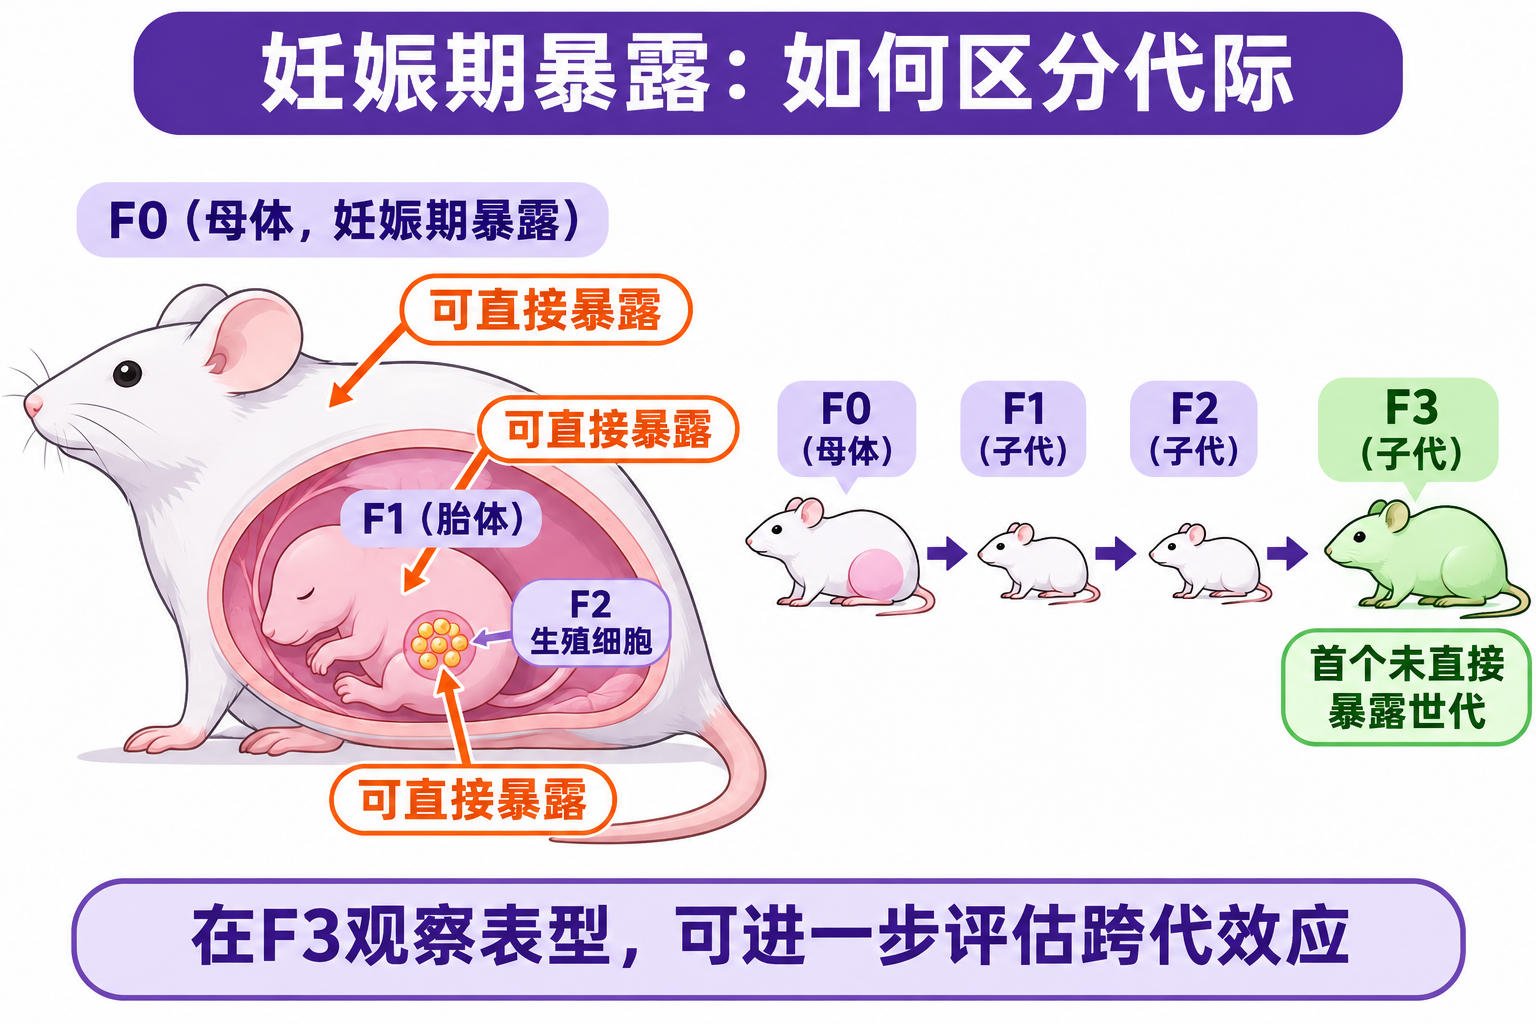 F0母体在妊娠期暴露时,F1胎体及其中形成F2的生殖细胞均可直接暴露;F3是这一情景下首个未直接暴露的世代。
历史沿革编辑本段
跨代可塑性的思想可追溯至拉马克的获得性遗传假说,但长期被现代综合论排斥。20世纪中叶,Waddington提出表观遗传景观模型,暗示环境可影响发育轨迹。20世纪末,表观遗传学兴起,DNA甲基化、基因组印记等现象为跨代传递提供了分子解释。2000年代后,大量动物实验(如大鼠母性行为、小鼠内分泌干扰物暴露)和流行病学研究(如荷兰饥饿冬天队列)推动了该领域的发展。2010年以来,跨代可塑性成为进化生物学和生态学的前沿议题,相关综述和元分析不断涌现。
分子机制编辑本段
DNA甲基化是最受关注的机制之一。亲代环境可改变配子(精子或卵子)的甲基化模式,进而影响胚胎基因表达。例如,小鼠高脂饮食可改变精子中某些代谢相关基因的甲基化,导致子代糖耐量异常。然而,哺乳动物早期胚胎经历大规模去甲基化和重编程,多数甲基化标记被擦除,只有部分印记基因或重复序列逃逸重编程,因此跨代稳定性存在争议。
组蛋白修饰(如H3K4me3、H3K27me3)和染色质重塑可在精子发生过程中被保留,并影响早期胚胎转录。非编码RNA,特别是精子中的微小RNA(miRNA)和piRNA,被证明可介导应激、饮食等环境信息的跨代传递。例如,小鼠父代应激可改变精子miRNA谱,进而影响子代下丘脑-垂体-肾上腺轴功能。
此外,细胞外囊泡、微生物组和亲代护理行为等也参与跨代传递。在植物中,小RNA和DNA甲基化可通过配子传递,介导对逆境记忆的跨代遗传。
实证证据编辑本段
动物实验提供了丰富证据。大鼠母性舔舐行为差异可导致子代应激反应表观遗传改变,且该效应可跨代传递。小鼠内分泌干扰物(如双酚A、邻苯二甲酸酯)暴露可影响多代生殖和代谢表型。果蝇和线虫模型则揭示了跨代可塑性的遗传筛选和分子通路。
人类流行病学研究中,荷兰饥饿冬天队列显示孕早期营养缺乏与子代代谢和心血管疾病风险增加相关,部分效应可延伸至孙代。瑞典Överkalix队列亦报告了祖辈食物供应与后代寿命和疾病风险的关联,但受限于回顾性设计和混杂因素,因果推断需谨慎。
生态学研究中,植物和鱼类跨代可塑性被广泛报道,例如父代经历捕食风险可改变子代形态和行为防御。
理论模型与进化意义编辑本段
理论模型探讨跨代可塑性何时被选择。若环境变化可预测,亲代通过TGP“预适应”后代可提高适合度;若环境不可预测,TGP可能带来错配代价。模型预测TGP在世代时间短、环境波动有自相关性的物种中更易演化。跨代可塑性还可能影响进化速率:一方面可缓冲选择压力,延缓遗传适应;另一方面可通过表型变异暴露于选择,促进进化。表观遗传变异是否可稳定遗传并成为进化创新的来源,仍是核心争议。
方法论挑战编辑本段
跨代可塑性研究面临多重挑战:其一,区分直接暴露与真正跨代传递需严谨的实验设计(如交叉抚育、胚胎移植);其二,表观遗传标记的因果性需通过编辑或药理学干预验证;其三,效应量常较小且受遗传背景、环境和实验室条件影响,可重复性存疑;其四,人类研究受伦理和混杂限制,难以确立因果。近年来,多组学、单细胞测序和谱系追踪技术为机制解析提供了新工具。
研究前沿与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。