
哈代-温伯格定律
一、历史背景与提出编辑本段
1908年,英国数学家戈弗雷·哈罗德·哈代(G. H. Hardy)在《科学》杂志上发表了一篇题为《孟德尔遗传学中的比例》的短文,用简洁的代数论证了在随机交配的群体中,孟德尔遗传因子的频率不会因遗传本身而改变。几乎同时,德国医生威廉·温伯格(Wilhelm Weinberg)在独立研究人类遗传病时也得出了相同结论,并进一步考虑了多等位基因和近亲结婚的影响。两人的工作共同构成了群体遗传学的第一个数学模型,即哈代-温伯格定律(Hardy-Weinberg law),有时也称哈代-温伯格平衡(Hardy-Weinberg equilibrium, HWE)。
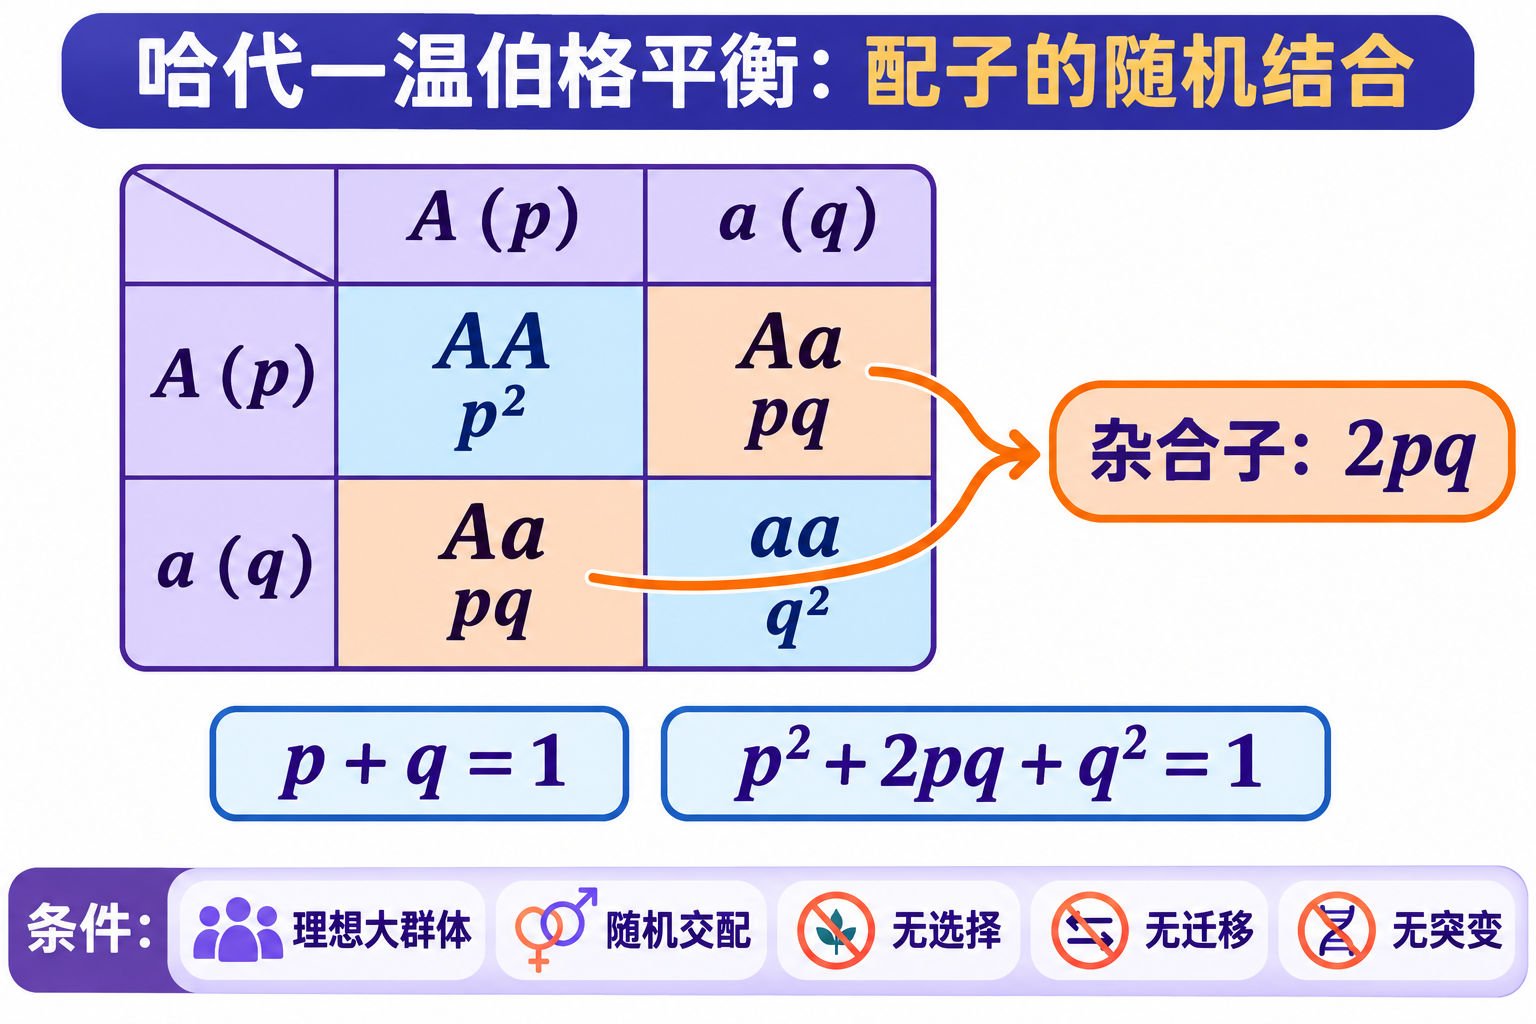 等位基因A和a的频率分别为p和q,随机结合产生p²、2pq和q²的基因型比例;两个杂合组合的频率相加为2pq。
该定律的提出正值孟德尔遗传学与达尔文进化论融合的关键时期。此前,人们困惑于为何显性有害基因不会被自然选择迅速淘汰,哈代-温伯格定律表明,在没有选择等进化力量作用时,等位基因频率保持不变,从而解释了遗传变异的维持机制。此后,费希尔、霍尔丹和赖特等学者在此基础上发展出了现代综合进化理论。
二、数学模型与推导编辑本段
考虑一个二倍体生物群体,常染色体上有一对等位基因A和a,频率分别为p和q(p+q=1)。假设群体满足以下条件:种群无限大、随机交配、无突变、无迁移、无自然选择。设初始基因型频率为AA: P, Aa: H, aa: Q。则等位基因频率为p = P + H/2,q = Q + H/2。在随机交配下,配子随机结合,子代基因型频率由等位基因频率的乘积决定:AA频率为p²,Aa频率为2pq,aa频率为q²。此后,只要上述条件持续满足,等位基因频率和基因型频率将世代保持不变。
对于多等位基因,例如三个等位基因A1、A2、A3,频率为p、q、r,则基因型频率为(p+q+r)²展开的对应项。对于性连锁基因,由于雌雄配子传递规律不同,平衡过程需要多代才能达到,且平衡时雌雄基因型频率存在差异。
哈代-温伯格平衡的偏离检验常用卡方拟合优度检验,比较观测基因型数与期望数。当群体较小、存在近交或选择时,杂合子频率往往低于2pq,表现为杂合子缺乏,此时可用固定指数F(F = 1 - H_obs/H_exp)来度量偏离程度。
三、成立条件与生物学意义编辑本段
哈代-温伯格定律的成立依赖于五个理想条件:1)种群无限大,以避免遗传漂变;2)随机交配,即个体间交配与基因型无关;3)无突变,等位基因不会相互转化;4)无迁移,即无基因流;5)无自然选择,所有基因型具有相同的适合度。这些条件在自然界中几乎不可能完全满足,因此该定律通常作为零假设模型,用于检测进化力量的作用。
该定律的生物学意义在于:首先,它阐明了遗传变异的稳定性,解释了为何隐性有害基因能够在群体中长期存在(以杂合子形式隐藏于显性表型下);其次,它为定量研究进化提供了框架,任何等位基因频率的变化都可归因于突变、选择、漂变或迁移;第三,它是群体遗传学、保护遗传学和医学遗传学中估计等位基因频率和基因型频率的基础。例如,对于常染色体隐性遗传病,若已知发病率q²,可估算携带者频率2pq和致病等位基因频率q。
四、应用与扩展编辑本段
在医学遗传学中,哈代-温伯格定律被广泛用于估算遗传病的携带者频率和遗传咨询。例如,囊性纤维化在白种人中的发病率约为1/2500,则致病等位基因频率q≈1/50,携带者频率2pq≈1/25。在法医学中,该定律用于计算DNA分型的匹配概率,评估证据强度。在保护遗传学中,通过比较观测杂合度与期望杂合度,可评估种群的遗传多样性和近交程度。
在进化生物学中,哈代-温伯格定律是检测自然选择、遗传漂变和基因流等进化力量作用的基础。例如,通过比较不同基因座的F_ST值,可量化群体间的遗传分化。在基因组学研究中,HWE检验常用于质量控制,识别基因分型错误或选择信号。近年来,全基因组关联研究(GWAS)中,显著偏离HWE的SNP往往被标记为潜在的分型错误,但也可能是由于选择或近交导致。
五、局限性与批评编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。