
皮肤触觉
皮肤触觉的解剖学基础编辑本段
皮肤是人体最大的感觉器官,其内分布着多种特化的机械感受器,共同构成触觉感知的结构基础。根据有无被囊,机械感受器可分为无被囊的游离神经末梢和有被囊的复杂结构。无毛皮肤(如指尖、手掌)中,梅斯纳小体(Meissner corpuscle)位于真皮乳头层,对低频振动(约5-50 Hz)和皮肤动态变形敏感,负责精细触觉辨别;梅克尔盘(Merkel disc)位于表皮基底层,由梅克尔细胞与Aβ传入纤维终末形成复合体,对静态压痕和低频振动(<5 Hz)敏感,参与形状和纹理的编码。帕西尼小体(Pacinian corpuscle)位于真皮深层和皮下组织,对高频振动(50-400 Hz)敏感,其层状囊结构具有高通滤波特性,介导振动觉和深压觉。鲁菲尼小体(Ruffini ending)位于真皮网状层,对皮肤牵拉和关节位置敏感,参与本体感觉和皮肤拉伸的编码。此外,毛囊周围分布着毛囊感受器,可检测毛发运动。这些感受器的分布密度因身体部位而异,指尖的梅斯纳小体和梅克尔盘密度最高,这解释了指尖触觉空间分辨率的优势。
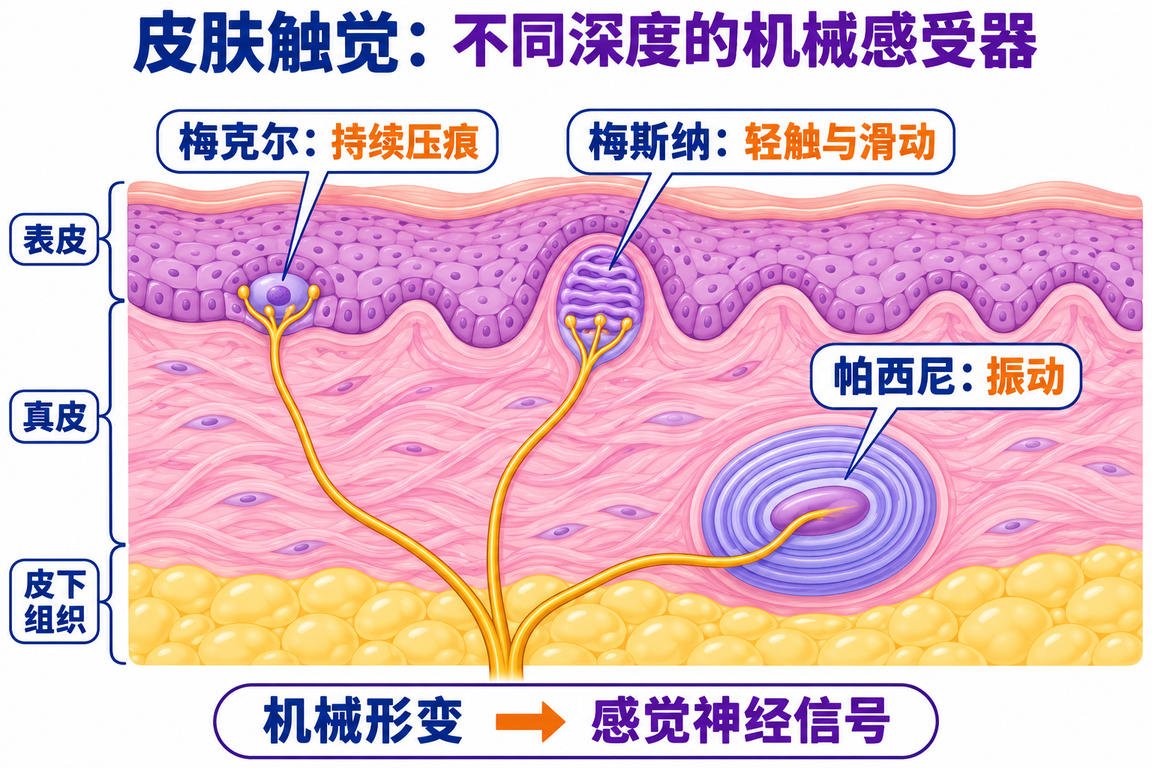 梅克尔细胞位于表皮基底层,梅斯纳小体位于真皮乳头,帕西尼小体位于较深部;机械形变经感觉末梢转化为神经信号。
触觉信号的转导与编码编辑本段
机械刺激转换为电信号的过程称为机械转导。机械敏感离子通道在此过程中起核心作用,其中Piezo2是哺乳动物皮肤机械感受器中最重要的转导分子。Piezo2是一种大型跨膜蛋白,在梅斯纳小体、梅克尔细胞和帕西尼小体神经末梢中高表达,介导快速机械激活电流。Piezo2功能缺失突变会导致触觉和本体感觉严重缺陷,而Piezo1则更多参与血管发育和红细胞体积调节。机械转导后产生的感受器电位通过电压门控钠通道(如Nav1.7、Nav1.8)编码为动作电位序列。触觉信息通过“标记线”和“频率编码”两种策略传递:不同感受器类型与特定传入纤维形成专线连接,传递特定模态的信息;刺激强度则通过动作电位的频率和激活纤维的数量来编码。近年来,研究发现机械感受器终末的形态和细胞外基质成分可调节机械敏感通道的激活阈值和动力学,从而实现信号滤波和调谐。
触觉传入通路与中枢处理编辑本段
皮肤触觉的传入纤维主要为有髓的Aβ纤维(直径6-12 μm,传导速度35-75 m/s),其胞体位于背根神经节,中枢突经背根进入脊髓后索,沿同侧后柱上行至延髓薄束核和楔束核,换元后经内侧丘系交叉至对侧,投射至丘脑腹后外侧核,再发出纤维经内囊后肢投射至初级躯体感觉皮层(S1)。S1位于中央后回,具有精细的躯体定位图(“感觉侏儒”),手部和面部占据较大代表区。S1的神经元对触觉刺激的特征(如位置、强度、频率)进行编码,并通过层内和跨柱连接实现特征整合。次级躯体感觉皮层(S2)、岛叶和顶叶后部皮层参与触觉物体识别和跨模态整合。触觉信息还通过背柱核和脊髓丘脑束的侧支投射至脑干和丘脑的多个核团,参与触觉-疼痛交互和情绪加工。此外,触觉输入在发育关键期对躯体感觉皮层拓扑图的形成和维持至关重要,感觉剥夺可导致皮层代表区重组。
触觉的心理物理学特性编辑本段
皮肤触觉具有多项可量化的心理物理学特性。空间分辨率(两点辨别阈)在指尖约2-3 mm,手掌约10 mm,背部约40 mm,与感受器密度和皮层放大效应一致。频率辨别依赖于不同感受器通道的协同:低频振动(<50 Hz)由梅斯纳小体和梅克尔盘编码,高频振动(>50 Hz)由帕西尼小体编码。触觉时间分辨率可达数毫秒,但受刺激时长和注意调制。触觉刺激还可引发主观感觉强度的时间总和与适应现象:持续刺激下,快适应纤维(梅斯纳小体和帕西尼小体)反应迅速衰减,而慢适应纤维(梅克尔盘和鲁菲尼小体)维持放电,共同支持动态和静态触觉的分离编码。触觉学习可显著提高空间分辨率和频率辨别能力,表明触觉系统具有经验依赖性可塑性。
触觉的功能意义与临床关联编辑本段
触觉在人类行为中发挥多重功能。在运动控制中,触觉反馈调节抓握力,防止物体滑脱;在物体识别中,触觉探索策略(如轮廓跟随、表面扫描)与感受器特性匹配,实现高效信息采集;在社会交流中,缓慢、轻柔的触觉刺激激活C类触觉纤维(CT纤维),投射至岛叶,传递愉悦和情感信息。触觉还参与疼痛调制,触觉刺激可抑制疼痛(“触觉镇痛”),其机制涉及脊髓背角的门控和下行抑制系统。临床上,触觉功能障碍见于糖尿病周围神经病、化疗诱导的周围神经病、腕管综合征和脊髓损伤。定量感觉测试可评估触觉阈值和振动觉,辅助诊断小纤维神经病。遗传性触觉障碍(如Piezo2突变)表现为触觉和本体感觉丧失但疼痛和温度觉保留,揭示了分子通路的特异性。此外,触觉研究推动了仿生触觉传感器和神经假肢的发展,通过微刺激电极在截肢者残端神经或皮层内诱发电触觉,恢复部分触觉反馈。
研究前沿与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。