
IgM
一、分子结构与基因组织编辑本段
IgM单体由两条重链(μ链)和两条轻链(κ或λ)通过二硫键连接而成,每个单体包含两个可变区(VH-VL)和四个恒定区(CH1-CH4)。与IgG不同,μ链的CH4结构域替代了铰链区,赋予其更大的柔性和多价结合能力。分泌型IgM(sIgM)在B细胞内组装为五聚体或六聚体,五聚体由J链(joining chain)通过二硫键连接五个单体,形成星状结构,分子量约970 kDa;六聚体则不含J链,多见于低等脊椎动物。膜结合型IgM(mIgM)通过可变剪接将CH4外显子替换为跨膜外显子,表达于B细胞表面,与Igα/Igβ异二聚体非共价结合形成B细胞受体(BCR)复合物。μ链基因位于人类14号染色体(14q32.33),包含V、D、J、C四个基因片段,其重排是B细胞发育早期的标志性事件。
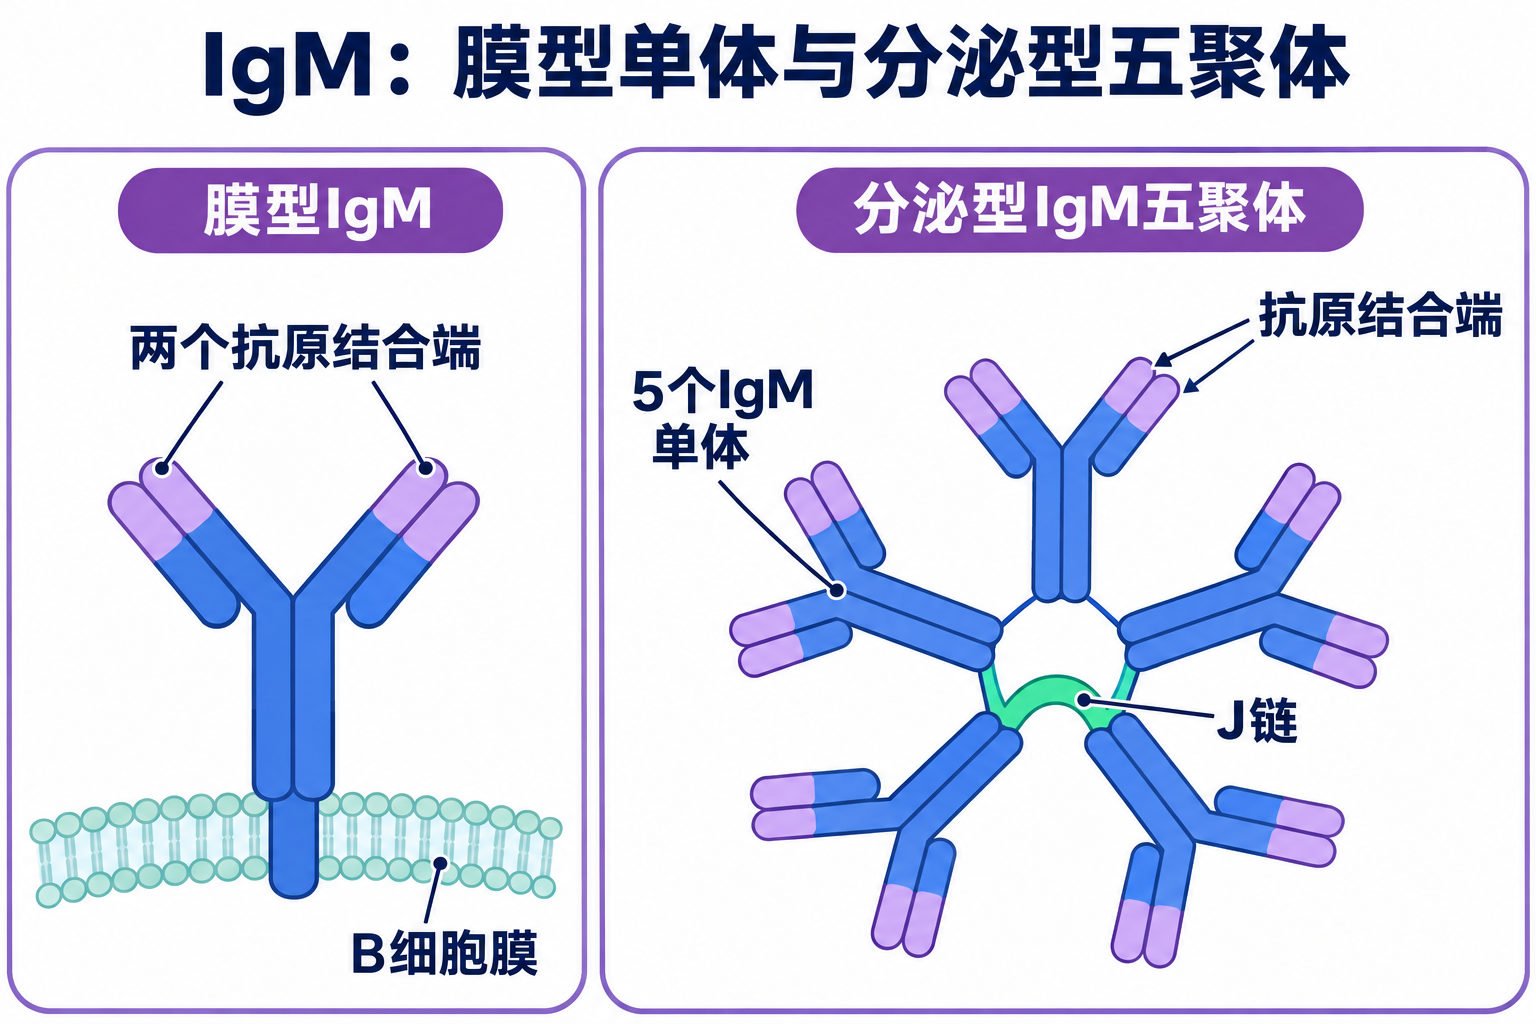 膜型IgM以单体形式锚定在B细胞膜上;分泌型五聚体由5个IgM单体和J链组成,抗原结合端位于外侧。
二、表达与B细胞发育编辑本段
IgM是B细胞发育过程中最先表达的免疫球蛋白。在骨髓中,pro-B细胞完成DJ重排后进入pre-B阶段,表达pre-BCR(由μ链与替代轻链组成),驱动轻链重排;随后未成熟B细胞表面表达mIgM,此时若遭遇自身抗原,可发生受体编辑或克隆消除。成熟B细胞同时表达mIgM和mIgD,进入外周后参与滤泡性B细胞应答。B-1细胞(主要分布于腹腔和胸腔)和边缘区B细胞(脾脏)以mIgM为主要BCR,对T细胞非依赖性抗原产生快速应答,并分泌天然IgM。浆细胞分泌的IgM以五聚体为主,半衰期约5天,血清浓度约1.5 mg/mL(占血清免疫球蛋白的5%-10%)。
三、免疫功能:初级应答与天然免疫编辑本段
IgM是初次体液免疫应答中最早产生的抗体,通常在感染后3-5天即可检出,早于IgG。其五聚体结构提供10个抗原结合位点(六聚体12个),具有高亲合力(avidity),可高效凝集细菌、中和病毒,尤其对革兰阴性菌脂多糖和包膜病毒有强结合力。IgM是经典补体途径最强的激活剂:单个五聚体IgM与抗原结合后即可通过C1q结合CH3结构域,触发补体级联,形成膜攻击复合物并促进调理吞噬。此外,IgM可介导吞噬细胞FcμR依赖的吞噬作用,并参与凋亡细胞清除(与磷脂酰胆碱等自身抗原结合)。在黏膜免疫中,分泌型IgM(含J链和pIgR介导的分泌成分)可替代IgA发挥中和作用,尤其在IgA缺陷个体中代偿性升高。天然抗体(如抗ABO血型抗体、抗Gal抗体)大多为IgM,由B-1细胞持续分泌,构成天然免疫的第一道防线。
四、临床与病理意义编辑本段
①感染诊断:血清特异性IgM升高提示近期感染,用于急性肝炎、EB病毒、巨细胞病毒、风疹病毒、弓形虫及梅毒等诊断;新生儿脐带血IgM升高提示宫内感染(正常胎儿IgM不能通过胎盘)。②自身免疫病:类风湿因子(RF)以IgM为主,冷球蛋白血症(I型为单克隆IgM,II型为多克隆IgM+单克隆IgG)可导致血管炎;IgM型抗磷脂抗体与血栓形成相关。③单克隆丙种球蛋白病:Waldenström巨球蛋白血症由淋巴浆细胞淋巴瘤分泌单克隆IgM,引起高黏滞综合征;意义未明的单克隆丙种球蛋白病(MGUS)中IgM型占15%-20%。④原发性免疫缺陷:高IgM综合征(HIGM)由CD40L、CD40或AID基因突变导致,表现为IgM正常或升高而IgG、IgA、IgE缺陷,易反复感染。⑤移植与输血:ABO血型抗体为IgM,可导致超急性排斥反应;抗A/B IgM滴度用于器官移植前评估。
五、检测方法与参考范围编辑本段
血清IgM常用免疫比浊法、ELISA或化学发光法检测,成人参考范围约0.4-2.3 g/L(因方法和实验室而异)。特异性IgM抗体检测需注意类风湿因子和嗜异性抗体的干扰,可采用吸附剂或Western blot确证。流式细胞术可检测B细胞表面mIgM表达,用于B细胞分化发育评估及微小残留病监测。免疫固定电泳用于鉴定单克隆IgM。总IgM升高见于急性感染、肝硬化、自身免疫病和巨球蛋白血症;降低见于原发性无丙种球蛋白血症、选择性IgM缺陷及免疫抑制治疗。
六、进化与治疗应用编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。