
T细胞活化
一、引言与基本概念编辑本段
T细胞活化(T cell activation)是适应性免疫应答的核心事件,指处于静息状态的初始T细胞(naïve T cell)或记忆T细胞在识别抗原后,经历信号转导、基因表达重编程、代谢重塑与克隆扩增,最终分化为具有效应功能的效应T细胞(effector T cell)和记忆T细胞(memory T cell)的完整过程。与B细胞可直接识别天然抗原不同,T细胞只能识别由抗原提呈细胞(APC)通过主要组织相容性复合体(MHC)分子递呈的抗原肽,这一特性决定了T细胞活化必须依赖细胞间的紧密接触与多信号协同。
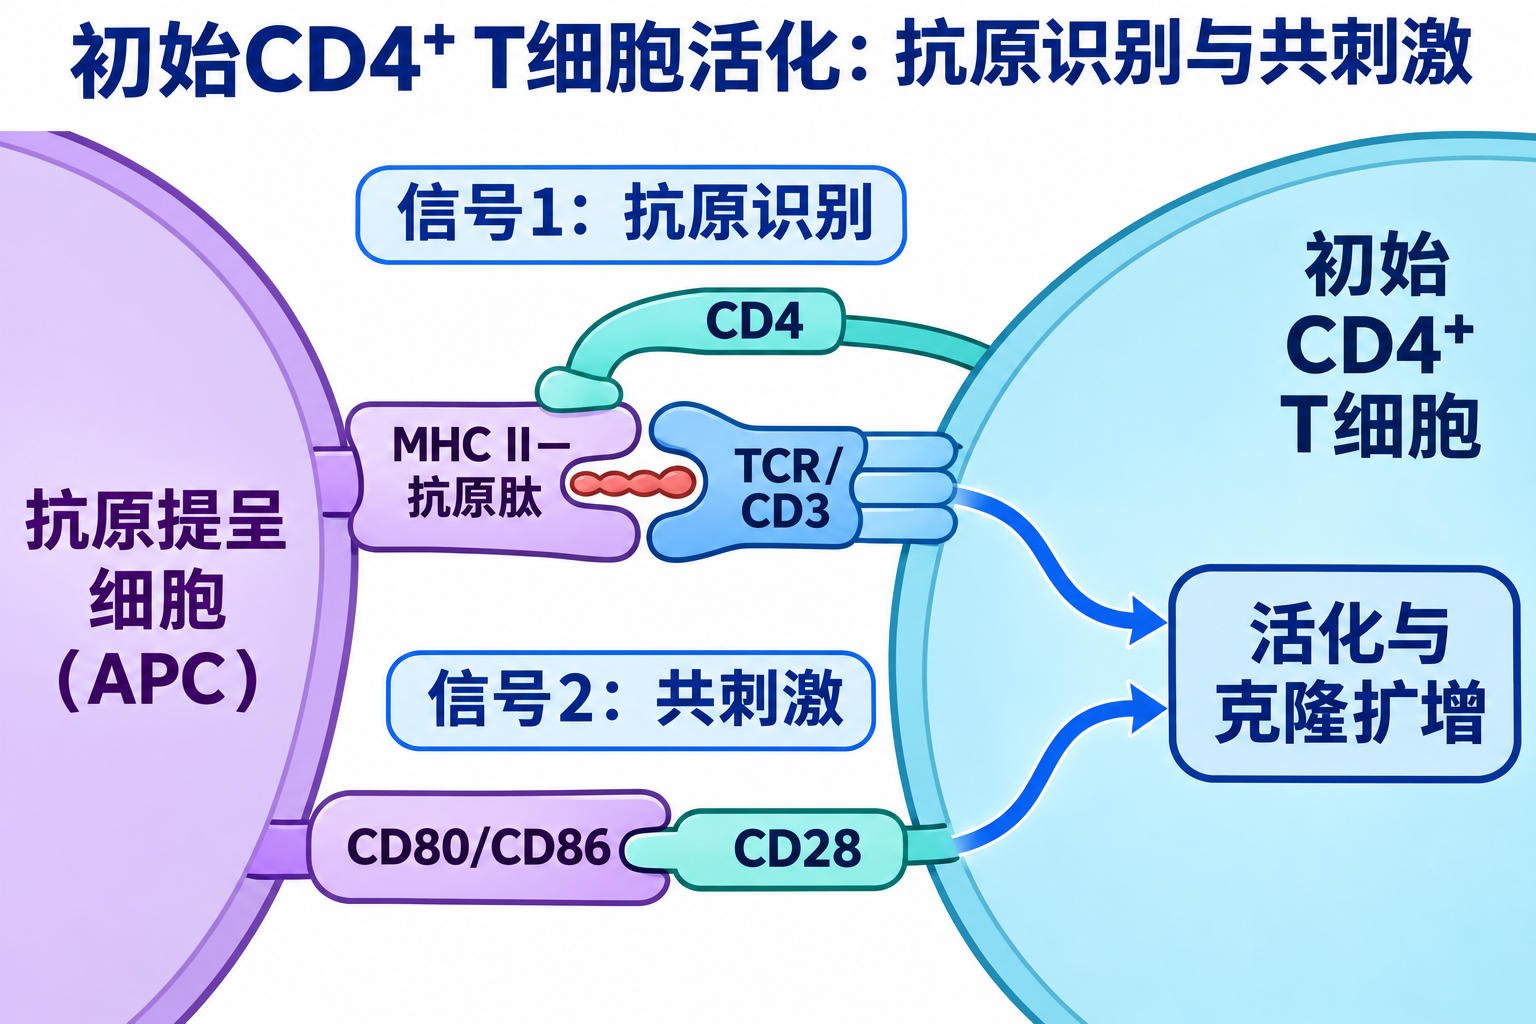 初始CD4⁺ T细胞通过TCR识别MHC II呈递的抗原肽,同时由CD28接收CD80/CD86共刺激信号,促进活化与克隆扩增。
经典免疫学将T细胞活化归纳为双信号模型(two-signal model):第一信号由T细胞受体(TCR)识别MHC-抗原肽复合物产生,赋予免疫应答的特异性;第二信号即共刺激信号,主要由APC表面的CD80/CD86与T细胞表面的CD28结合提供,赋予应答的充分性与有效性。缺乏第二信号时,T细胞将进入无能状态(anergy)或发生凋亡,从而维持对自身抗原的外周耐受。
二、第一信号:TCR-CD3复合物对抗原的识别编辑本段
TCR是由α链和β链(或γδ链)组成的异二聚体,其胞外结构域负责特异性识别MHC分子提呈的抗原肽,但TCR的胞内区极短,不具备信号转导能力。因此,TCR必须与CD3复合物(由γ、δ、ε、ζ链组成)非共价结合,形成TCR-CD3复合物。CD3各链的胞内区含有免疫受体酪氨酸激活基序(ITAM),是信号转导的结构基础。
抗原识别启动后,Src家族激酶Lck被招募至CD4或CD8共受体胞内段,磷酸化CD3链的ITAM酪氨酸残基。磷酸化的ITAM进一步招募并激活Syk家族激酶ZAP-70。ZAP-70随后磷酸化跨膜衔接蛋白LAT(linker for activation of T cells),形成称为信号体(signalosome)的多蛋白复合物平台,招募磷脂酶Cγ1(PLCγ1)、Grb2、Gads等关键分子,从而将信号向下游分流。
值得注意的是,TCR对抗原的识别具有高度敏感性与交叉反应性:单个MHC-抗原肽复合物即可触发T细胞应答,而同一TCR可识别结构相似的一系列抗原肽,这一特性在胸腺选择与外源抗原识别中均具有重要意义。此外,TCR信号还受到共受体CD4/CD8的辅助,它们分别结合MHC II类和I类分子的保守区域,并将Lck募集至TCR附近,显著增强信号强度。
三、第二信号:共刺激与共抑制的平衡编辑本段
共刺激信号是T细胞充分活化的必要条件。最重要的正向共刺激通路是CD28-B7通路:CD28组成性表达于初始T细胞表面,与APC表面的CD80(B7-1)和CD86(B7-2)结合后,招募PI3K和Grb2,激活下游的PI3K-Akt信号通路,促进IL-2转录、增强细胞存活与代谢活性。CD28信号还能降低TCR活化的阈值,使T细胞对低亲和力抗原产生有效应答。
与CD28作用相反,CTLA-4(CD152)与B7分子结合的亲和力更高,传递抑制性信号,限制T细胞过度活化,是免疫检查点调控的关键分子。另一对重要的共抑制通路是PD-1与PD-L1/PD-L2,在肿瘤微环境中介导T细胞功能耗竭。此外,诱导性共刺激分子(ICOS)、OX40、4-1BB等属于肿瘤坏死因子受体家族的正向共刺激分子,而TIM-3、LAG-3等则发挥负向调控作用。共刺激与共抑制信号的动态平衡,决定了T细胞活化的强度与持续时间,也是免疫检查点抑制剂(如抗CTLA-4抗体、抗PD-1抗体)发挥抗肿瘤作用的分子基础。
四、下游信号通路与转录因子编辑本段
TCR信号通过PLCγ1水解磷脂酰肌醇二磷酸(PIP2)产生两个关键第二信使:三磷酸肌醇(IP3)和二酰甘油(DAG)。IP3触发内质网钙释放,导致胞内钙浓度升高,激活钙调磷酸酶(calcineurin),后者使转录因子NFAT去磷酸化并转位入核。DAG则激活Ras-MAPK通路和PKCθ,分别促进AP-1和NF-κB的活化。NFAT、AP-1与NF-κB协同结合于IL-2基因启动子及增强子区域,驱动IL-2等关键细胞因子的大量转录。
IL-2通过自分泌与旁分泌方式结合T细胞表面的IL-2受体(IL-2R),激活JAK-STAT5通路,进一步促进T细胞增殖、存活与效应分化。此外,TCR信号还激活PI3K-Akt-mTOR通路,驱动代谢重编程——活化T细胞从依赖氧化磷酸化转变为依赖有氧糖酵解,以满足快速增殖的生物合成需求。这一代谢转变是T细胞活化的重要标志,也为mTOR抑制剂等免疫调节药物提供了靶点。
五、活化后命运:克隆扩增、分化与记忆形成编辑本段
活化后的T细胞经历快速克隆扩增,一个抗原特异性T细胞可在数天内扩增为数千个效应细胞。CD4+ T细胞在IL-12、IL-4、IL-6/TGF-β等细胞因子极化条件下,分化为Th1、Th2、Th17、Tfh及Treg等不同亚群,分别介导细胞免疫、体液免疫辅助、黏膜免疫及免疫抑制功能。CD8+ T细胞在IL-2和炎症信号作用下分化为细胞毒性T淋巴细胞(CTL),通过穿孔素/颗粒酶途径及Fas/FasL途径杀伤靶细胞。
应答消退期,大部分效应T细胞发生凋亡,少数存活并分化为长寿命的记忆T细胞(包括中央记忆T细胞和效应记忆T细胞),在再次遇到相同抗原时产生更快更强的二次应答。记忆T细胞的维持依赖于IL-7和IL-15等稳态细胞因子,其表观遗传特征与初始T细胞显著不同,是疫苗设计追求的核心目标。
六、生理调控与病理意义编辑本段
T细胞活化受到多重负反馈调控,包括CTLA-4、PD-1等检查点分子、E3泛素连接酶Cbl对TCR的降解、蛋白磷酸酶对激酶的失活,以及调节性T细胞(Treg)的主动抑制。这些机制共同维持免疫自稳,防止自身免疫损伤。
在病理条件下,T细胞活化异常与多种疾病相关:自身免疫病(如类风湿关节炎、1型糖尿病)中T细胞对自身抗原异常活化;免疫缺陷(如重症联合免疫缺陷病)中T细胞活化信号通路存在遗传缺陷;肿瘤中T细胞功能耗竭导致免疫逃逸;移植排斥中供体抗原特异性T细胞活化介导移植物损伤。临床上的免疫抑制剂(如环孢素、他克莫司)通过抑制钙调磷酸酶阻断T细胞活化,广泛用于器官移植与自身免疫病治疗;而免疫检查点抑制剂和CAR-T细胞疗法则通过增强或重定向T细胞活化实现抗肿瘤效应,代表了现代免疫治疗的两大支柱。
七、研究展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。