
可弃体细胞理论
引言编辑本段
衰老是几乎所有生物体都会经历的生命过程,表现为生理功能随年龄增长而逐渐衰退,最终导致死亡。长期以来,科学家们从不同角度探索衰老的机制,提出了数十种理论。其中,可弃体细胞理论(Disposable Soma Theory,DST)从进化生物学角度出发,为理解衰老的终极原因提供了强有力的框架。该理论由英国生物学家Thomas Kirkwood于1977年正式提出,其核心思想是:生物体在有限资源约束下,必须在体细胞维持与修复和生殖之间进行权衡,自然选择倾向于将资源优先分配给生殖,从而牺牲体细胞的长期维护,导致衰老的发生。
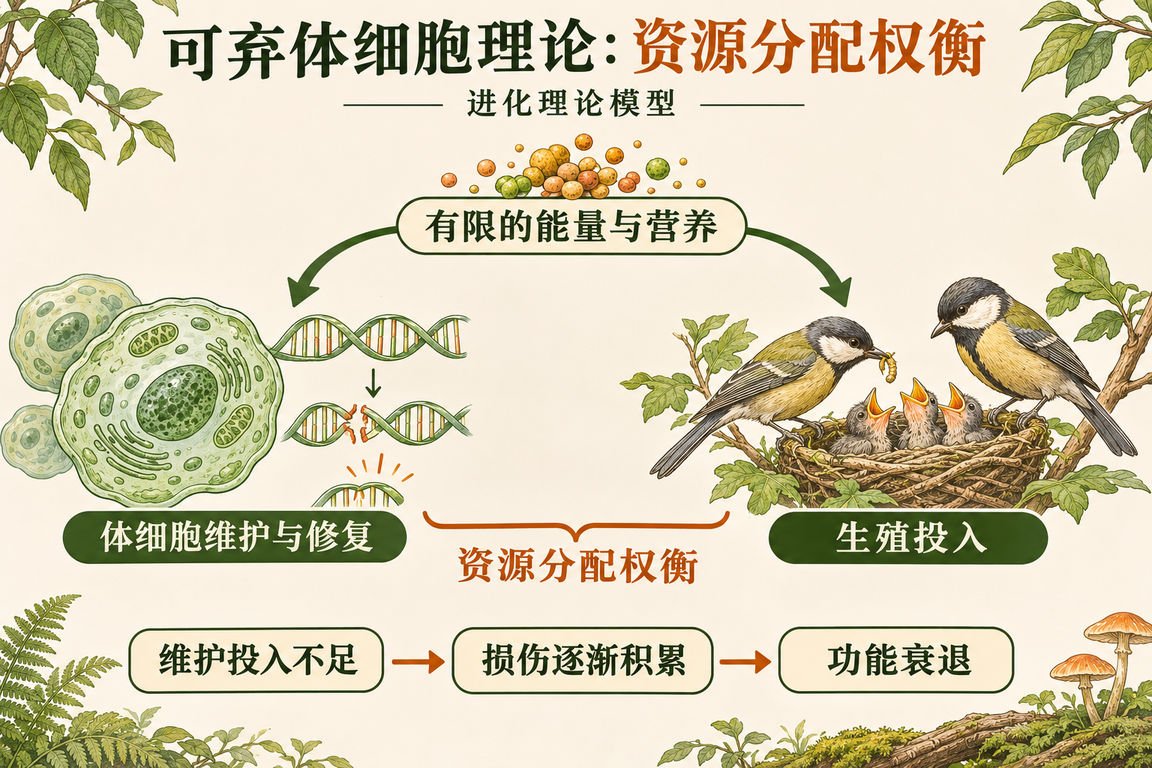 可弃体细胞理论将有限资源在体细胞维护与生殖投入之间的分配视为进化权衡。下方箭头表示维护投入不足、损伤积累与功能衰退的理论联系。
理论背景与历史编辑本段
在DST提出之前,衰老的进化理论主要有Medawar的突变积累理论和Williams的拮抗基因多效性理论。这些理论强调了自然选择在生命晚期作用的减弱,但未能充分解释为何生物体不将资源更多地用于维持自身。Kirkwood在1977年的论文《Evolution of ageing》中首次系统阐述了DST,将能量分配权衡引入衰老研究,为衰老的进化解释增添了生理学基础。此后,该理论不断丰富,并得到广泛讨论和验证,成为现代衰老生物学的基石之一。
核心原理编辑本段
DST的理论基石可概括为以下几点:
1. 资源有限性:生物体可获取的能量和营养物质总是有限的,必须在各种生理功能之间进行分配。
2. 体细胞与生殖的权衡:维持体细胞(如DNA修复、蛋白质稳态、抗氧化防御)需要消耗能量,而这些能量本可用于生殖。自然选择优化的是个体一生的繁殖成功率(即适合度),而非无限期维持身体。
3. 可弃体细胞:由于环境中的外在死亡风险(如捕食、疾病、意外)不可避免,生物体演化出在生殖期后不再投入过多资源维持体细胞的策略。体细胞被视为“可弃”的,一旦完成生殖使命,其维持机制便被削减。
4. 衰老作为权衡的副产物:体细胞维护不足导致分子损伤(如DNA氧化损伤、蛋白质错误折叠)逐渐累积,最终引起细胞功能衰退和组织器官老化,表现为衰老及相关疾病。
理论预测与实验证据编辑本段
DST做出了若干可检验的预测,并得到大量实证支持:
预测1:在资源受限条件下,提高生殖投入会缩短寿命。实验表明,线虫、果蝇和小鼠中,去除生殖细胞或抑制生殖可延长寿命。例如,在线虫中,移除生殖干细胞可激活DAF-16/FOXO转录因子,增强体细胞应激抵抗,延长寿命约60%。
预测2:增强体细胞维护(如过表达抗氧化酶或DNA修复酶)应能延长寿命。在果蝇中过表达超氧化物歧化酶(SOD)或过氧化氢酶可延长寿命;在小鼠中,过表达过氧化氢酶靶向线粒体可延长寿命约20%。
预测3:不同物种的寿命应与其体细胞维护投入和外在死亡率相关。比较生物学研究显示,长寿物种(如裸鼹鼠、人类)通常具有更强的DNA修复能力、蛋白质稳态和抗氧化防御。例如,裸鼹鼠寿命可达30年,远长于同等体型的啮齿类,其细胞中蛋白酶体活性更高,翻译准确性更强。
预测4:热量限制(Caloric Restriction,CR)可延长寿命,因能量摄入减少迫使生物体重新分配资源,增加体细胞维护。CR在酵母、线虫、果蝇、小鼠乃至灵长类中均显示出延缓衰老的效果,其机制涉及胰岛素/IGF-1信号通路和mTOR通路的抑制,这些通路正是资源分配的关键调控节点。
与其他衰老理论的关系编辑本段
DST并非孤立存在,它与多种 proximate 机制理论相互补充。例如,自由基理论解释了体细胞损伤的来源(活性氧),而DST解释了为何生物体不投入更多资源清除这些损伤。拮抗基因多效性理论强调某些基因在生命早期有益而晚期有害,DST则从能量分配角度说明这种多效性的进化根源。此外,DST与mTOR通路、胰岛素/IGF-1信号等营养感应通路的发现相融合,这些通路在资源分配和衰老调控中起核心作用。
现代发展与争论编辑本段
自提出以来,DST经历了多次修正和扩展。Kirkwood本人提出了“网络理论”,将DST与分子损伤动力学结合。近年来,表观遗传改变、线粒体功能障碍、细胞衰老等衰老标志的发现,进一步丰富了对体细胞维护机制的理解。然而,DST也面临一些挑战:例如,某些物种在生殖后仍能长期存活(如人类女性绝经后),似乎与“可弃体细胞”概念不完全吻合;但支持者指出,绝经后女性通过帮助后代存活(祖母假说)仍可间接传递基因,因此自然选择仍可能维持一定的体细胞维护。此外,资源分配的分子机制尚待完全阐明,是当前研究热点。
意义与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。