
发育演化
一、学科定义与历史脉络编辑本段
发育演化(Evolutionary Developmental Biology,简称 Evo-Devo)是研究发育过程与演化机制之间相互关系的生物学分支。它试图回答一个根本问题:胚胎发育中的分子与细胞机制如何改变,从而产生形态的创新与多样性?传统演化生物学关注成体形态的变异与自然选择,而发育生物学侧重于个体发生的机制;发育演化将二者整合,强调发育本身是演化的产物,也是演化创新的源泉。
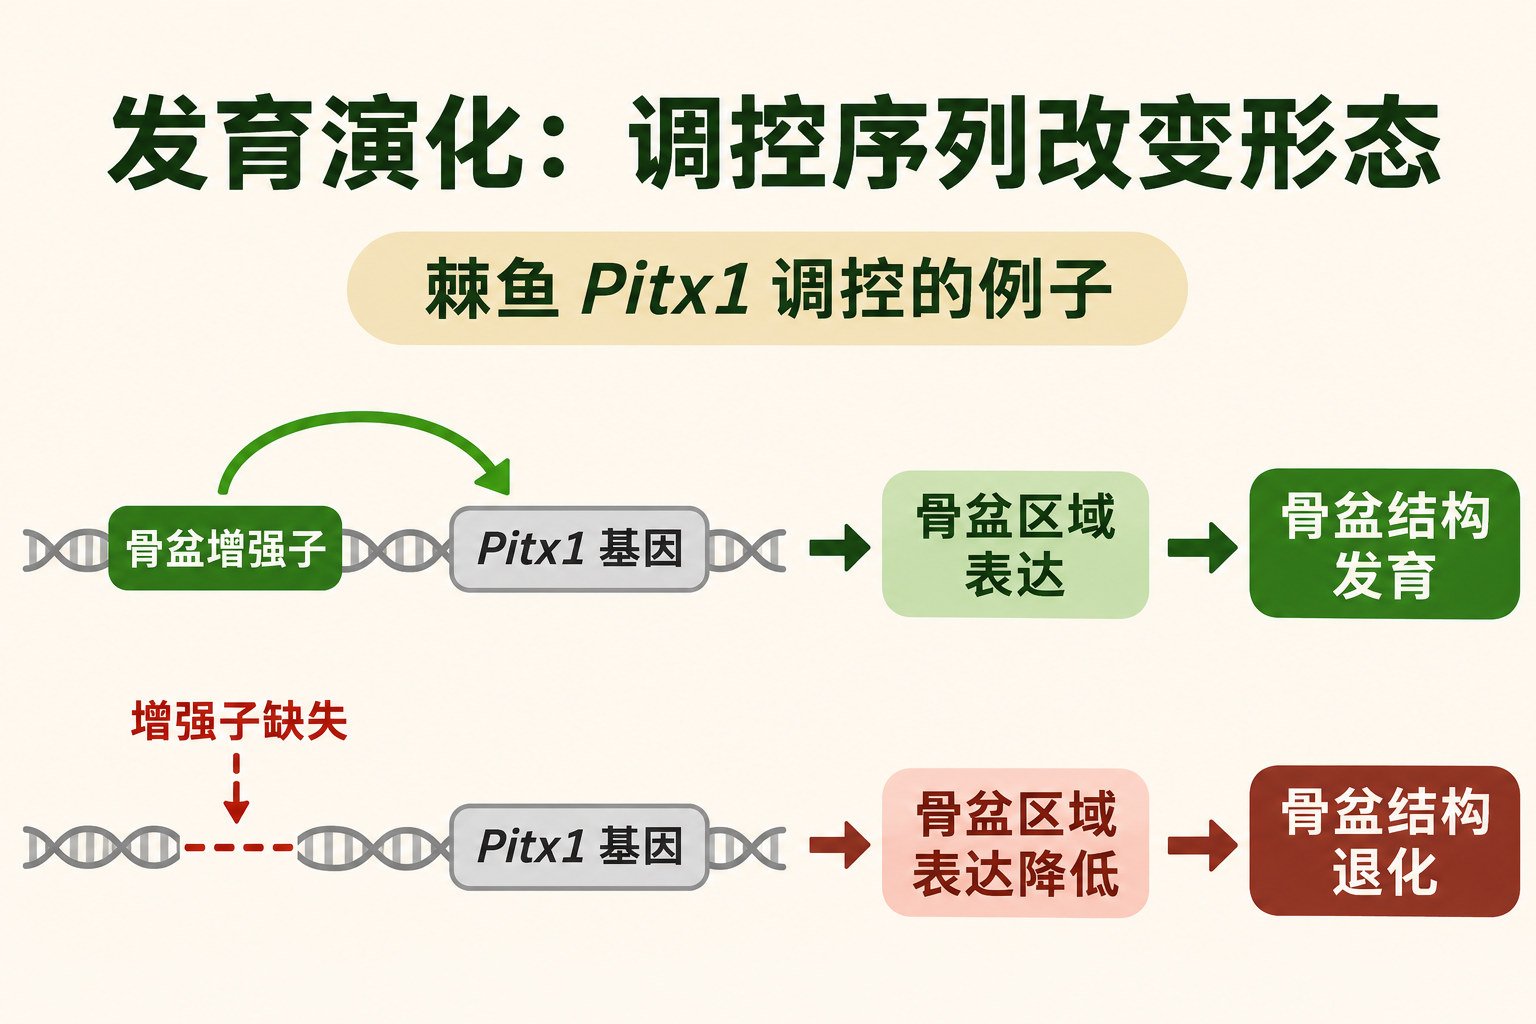 棘鱼的骨盆增强子调控 Pitx1 在骨盆区域的表达;该增强子缺失可降低局部表达,参与骨盆结构退化。图中保留的基因框表示 Pitx1 编码区。
该领域的早期思想可追溯到19世纪。冯·贝尔(Karl Ernst von Baer)提出胚胎发育的“分化”规律;海克尔(Ernst Haeckel)的“重演律”虽后被修正,但激发了比较胚胎学研究。20世纪80年代,随着同源盒(homeobox)基因的发现,发育生物学与演化生物学开始深度交叉。霍兰(Peter Holland)等人提出“发育演化”一词,随后《Evolution & Development》期刊创刊,标志着学科的正式确立。中国学者在比较胚胎学和进化发育领域亦有贡献,例如对文昌鱼和半索动物发育的比较研究。
二、核心概念与分子机制编辑本段
发育演化的理论框架建立在几个核心概念之上。异时(heterochrony)指发育事件时间的变化导致形态差异,如蝾螈的幼态持续;异位(heterotopy)指发育过程空间位置的变化,如牙齿在咽部的异位发育;异量(heterometry)指基因表达量的变化,如达尔文雀喙的形态差异与BMP4表达水平相关。这些“异”机制揭示了形态演化不必依赖新基因,而可通过改变已有基因的表达模式实现。
分子层面的核心发现是调控基因的招募与重编程。同源盒基因(Hox基因)在染色体上的排列顺序与沿体轴表达的区域边界具有共线性,这一特性在两侧对称动物中高度保守。Hox基因的突变或表达域变化可导致体节和附肢的深刻改变,例如昆虫翅的演化与Ubx基因的功能抑制相关。此外,顺式调控元件(如增强子)的突变被认为是形态演化的主要来源,因为它们能改变基因的表达时空而无损其原有功能。例如,Pitx1增强子突变导致棘鱼骨盆缺失,为自然种群中的演化提供了分子证据。
发育信号通路(如Wnt、Hedgehog、TGF-β/BMP、FGF)在演化中高度保守,但通过不同的组合与反馈,形成物种特异的形态。模块化(modularity)概念进一步解释了复杂结构的演化:发育模块可独立变化,降低多效性限制,例如脊椎动物肢体与躯干的分离。
三、深层同源与形态创新编辑本段
发育演化最具影响力的发现之一是深层同源性(deep homology):在系统发生上相距甚远的动物,可共享相同的调控基因来形成并非同源的结构。典型例子是眼睛发育:果蝇的eyeless、小鼠的Pax6和人类的PAX6都可以诱导异位眼形成,尽管头足类、脊椎动物和节肢动物的眼睛形态各异且独立演化。这表明,眼睛的“主控开关”基因在两侧对称动物共同祖先中已存在,而不同类群在此基础上构建了不同的眼结构。
形态创新的另一个机制是基因复制与亚功能化。脊椎动物经历了两次全基因组复制,随后多数旁系同源基因丢失,但保留的基因获得了新的表达域或功能,为脊椎动物特有的结构(如神经嵴)提供了遗传基础。神经嵴细胞的演化被视为 vertebrates 的“第四胚层”,其迁移和分化能力源于基因调控网络的重新布线。
四、表型可塑性与生态-发育互作编辑本段
发育演化还强调表型可塑性(phenotypic plasticity)——同一基因型在不同环境条件下产生不同表型。可塑性可以缓冲选择压力,也可通过“遗传同化”被固定为组成型性状,从而促进演化。生态-发育互作(eco-devo)研究环境因素(温度、营养、捕食信号)如何影响发育轨迹,并反馈至种群动态与适应。例如,两栖类蝌蚪在捕食者存在时发育出更高的尾鳍,这种可塑反应由甲状腺激素信号通路的可调性介导。
五、研究意义与未来方向编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。