
棕榈酰化
概述编辑本段
棕榈酰化(Palmitoylation),又称S-棕榈酰化或S-酰化,是一种常见的翻译后修饰,指将16碳饱和脂肪酸——棕榈酸通过硫酯键共价连接到蛋白质特定半胱氨酸残基的巯基上。与N-肉豆蔻酰化和异戊二烯化(如法尼基化、香叶基香叶基化)不同,棕榈酰化是动态可逆的,这使其成为细胞精细调控蛋白质功能的理想机制。该修饰广泛存在于真核生物中,影响蛋白质的膜结合、亚细胞定位、稳定性以及蛋白质-蛋白质相互作用,参与细胞信号转导、突触传递、囊泡运输和病原体感染等多种生物学过程。
历史上,棕榈酰化最早于1979年在流感病毒血凝素蛋白中被发现,随后在多种病毒和细胞蛋白中得到鉴定。随着蛋白质组学技术的进步,目前已鉴定的棕榈酰化蛋白超过数千种,涵盖受体、离子通道、G蛋白、酶和支架蛋白等。
生化机制编辑本段
棕榈酰化反应
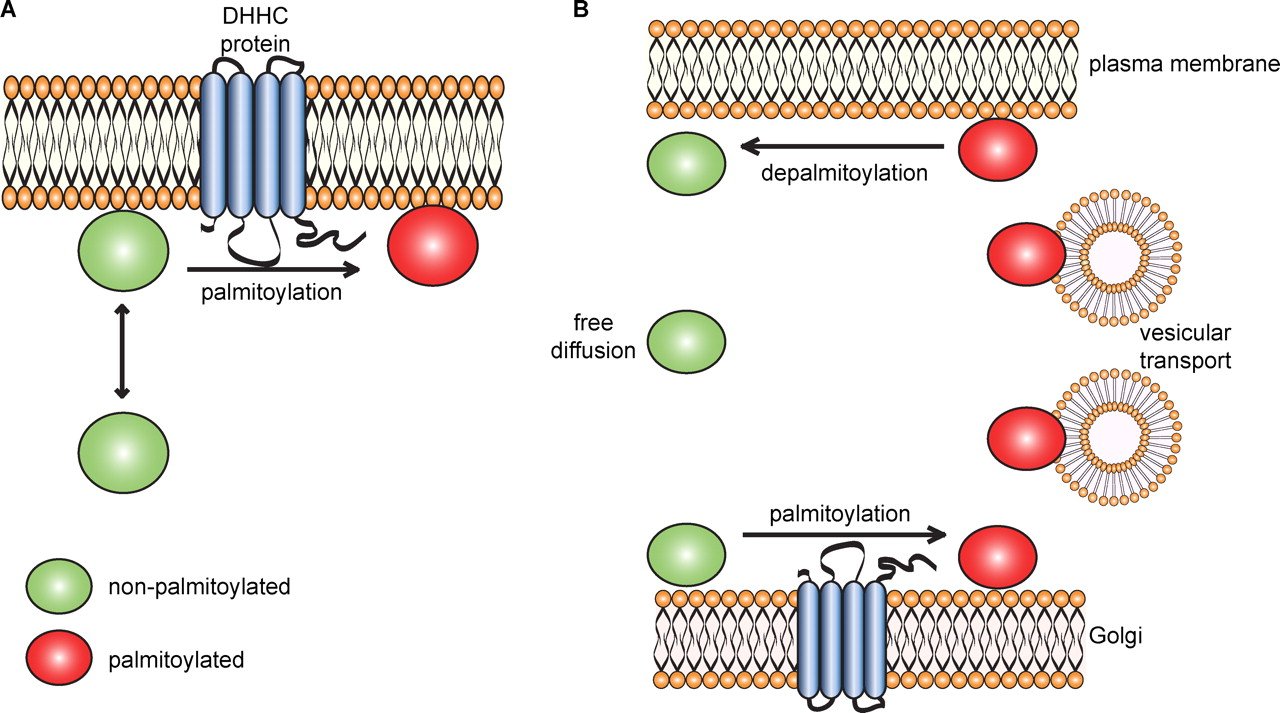
棕榈酰化由棕榈酰转移酶(Palmitoyltransferases, PATs)催化,这些酶通常含有DHHC(Asp-His-His-Cys)结构域,因此也被称为DHHC蛋白。在哺乳动物中,已发现24种DHHC蛋白,它们位于不同的细胞器膜上,负责底物特异性催化。反应中,棕榈酰辅酶A提供棕榈酰基,转移到底物蛋白的半胱氨酸硫原子上,形成硫酯键。
值得注意的是,少数情况下棕榈酰化也可发生在丝氨酸或苏氨酸残基上,形成氧酯键(O-酰化),例如Wnt蛋白的棕榈油酰化;或发生在赖氨酸残基上形成酰胺键(N-棕榈酰化),如刺猬蛋白的修饰。
去棕榈酰化反应
去棕榈酰化由硫酯酶催化,包括细胞溶胶中的酰基蛋白硫酯酶(APT1、APT2)和溶酶体中的棕榈酰蛋白硫酯酶1(PPT1)。APT1和APT2可去除多种膜蛋白上的棕榈酰基,而PPT1主要参与溶酶体降解途径。这些酶使棕榈酰化成为可逆过程,其动态周转速度从分钟到小时不等。
循环与调控
棕榈酰化与去棕榈酰化的循环使蛋白质能够在膜结合和游离状态之间快速转换,从而动态调节其功能。例如,Ras蛋白的棕榈酰化循环控制其从高尔基体到质膜的转运,而β2-肾上腺素能受体的棕榈酰化状态影响其内化和信号转导。
生物学功能编辑本段
膜结合与亚细胞定位
棕榈酰化显著增强蛋白质的疏水性,促进其与细胞膜的稳定结合。例如,Ras家族小G蛋白(H-Ras、N-Ras)通过法尼基化初步锚定于内质网膜,随后在其附近半胱氨酸上发生棕榈酰化,使其定向转运至质膜。G蛋白α亚基(Gsα、Giα)的棕榈酰化对于其与质膜内表面的连接至关重要,从而能够与G蛋白偶联受体(GPCR)有效相互作用。
此外,棕榈酰化还参与蛋白质在细胞器之间的分配。例如,SNAP-25(突触体相关蛋白25kDa)的棕榈酰化引导其定位于细胞膜,从而参与SNARE复合体的组装和囊泡融合。
蛋白质-蛋白质相互作用
棕榈酰化可调节蛋白质之间的相互作用。例如,突触后致密蛋白PSD-95的棕榈酰化使其锚定于突触后膜,进而招募并聚集离子通道(如AMPA受体)和信号分子,对突触可塑性和学习记忆至关重要。另一例子是δ-连环蛋白的棕榈酰化,它协调黏附分子、突触结构和受体定位的活动相关变化,参与记忆形成。
信号转导
许多信号蛋白依赖棕榈酰化进行正确定位和功能发挥。例如,内皮型一氧化氮合酶(eNOS)的棕榈酰化影响其在内皮细胞膜上的定位和NO产生。G蛋白信号转导中,α亚基的棕榈酰化与γ亚基的异戊二烯化共同锚定G蛋白于质膜,使其能够与GPCR相互作用并传递信号。
在疾病中的作用编辑本段
棕榈酰化异常与多种疾病密切相关:
研究方法编辑本段
棕榈酰化的检测常用方法包括:
总结与应用前景编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。