
半自主细胞器
半自主细胞器(Semiautonomous Organelle)是细胞生物学中一类具有独特遗传与代谢特征的细胞器,其典型代表为线粒体(mitochondrion)和叶绿体(chloroplast)。所谓“半自主”,意指这些细胞器既拥有自身的遗传物质和蛋白质合成系统,能够独立完成部分基因的复制、转录与翻译,又在很大程度上依赖核基因组编码的蛋白质。这种双重遗传控制体系构成了真核细胞中最为复杂的基因表达调控网络之一。
一、概念界定与内共生起源编辑本段
半自主细胞器的概念源于20世纪60年代对线粒体和叶绿体DNA的发现。1962年,Nass和Nass首次在鸡胚线粒体中观察到DNA纤维;随后,叶绿体DNA也在藻类和高等植物中被证实。这些细胞器含有环状或线状的双链DNA、核糖体、tRNA、rRNA以及RNA聚合酶等完整的转录翻译机器,能够合成少量但功能关键的疏水性膜蛋白亚基。
内共生学说(endosymbiotic theory)为半自主细胞器的起源提供了最有力的解释。该学说认为,线粒体起源于被宿主细胞吞噬的α-变形菌,叶绿体则起源于被吞噬的蓝细菌。在漫长的进化过程中,内共生体的大部分基因逐渐转移至宿主细胞核,仅保留少数必需基因,从而形成“半自主”状态。基因组测序数据显示,人类线粒体基因组仅编码37个基因(13个蛋白质、22个tRNA和2个rRNA),而拟南芥叶绿体基因组约编码100余个基因,均远少于其自由生活祖先的基因数量。
二、结构特征与基因组组织编辑本段
半自主细胞器通常具有双层膜结构。线粒体外膜通透性较高,内膜则向内折叠形成嵴,富含呼吸链复合体;叶绿体在双层膜之内还有类囊体膜系统,承载光反应复合体。两种细胞器的基因组多呈环状共价闭合DNA分子,以多拷贝形式存在于基质或核质中,并与内膜或类囊体膜结合形成类核(nucleoid)。
线粒体基因组(mtDNA)在动物细胞中通常为16.5 kb左右,基因排列紧凑,几乎不含内含子,部分基因存在重叠,其遗传密码与核基因组略有差异(如UGA编码色氨酸而非终止密码子)。植物线粒体基因组则大得多(200–2000 kb),结构复杂,含有大量重复序列和重组活跃区域。叶绿体基因组(cpDNA)大小一般为120–160 kb,具有典型的四段结构:大单拷贝区、小单拷贝区以及两个反向重复区,基因排列相对保守。
三、核质互作与蛋白质转运编辑本段
半自主细胞器的“半自主”本质体现在核基因组与细胞器基因组之间的紧密协同,即核质互作(nucleo-cytoplasmic interaction)。线粒体和叶绿体中的绝大多数蛋白质(约99%以上)由核基因编码,在细胞质游离核糖体上合成后,通过特定的靶向信号序列被转运至细胞器。线粒体蛋白通常带有N端前导肽(presequence),经TOM/TIM转运复合体进入基质或内膜;叶绿体蛋白则依赖转运肽(transit peptide)通过TOC/TIC复合体进入。
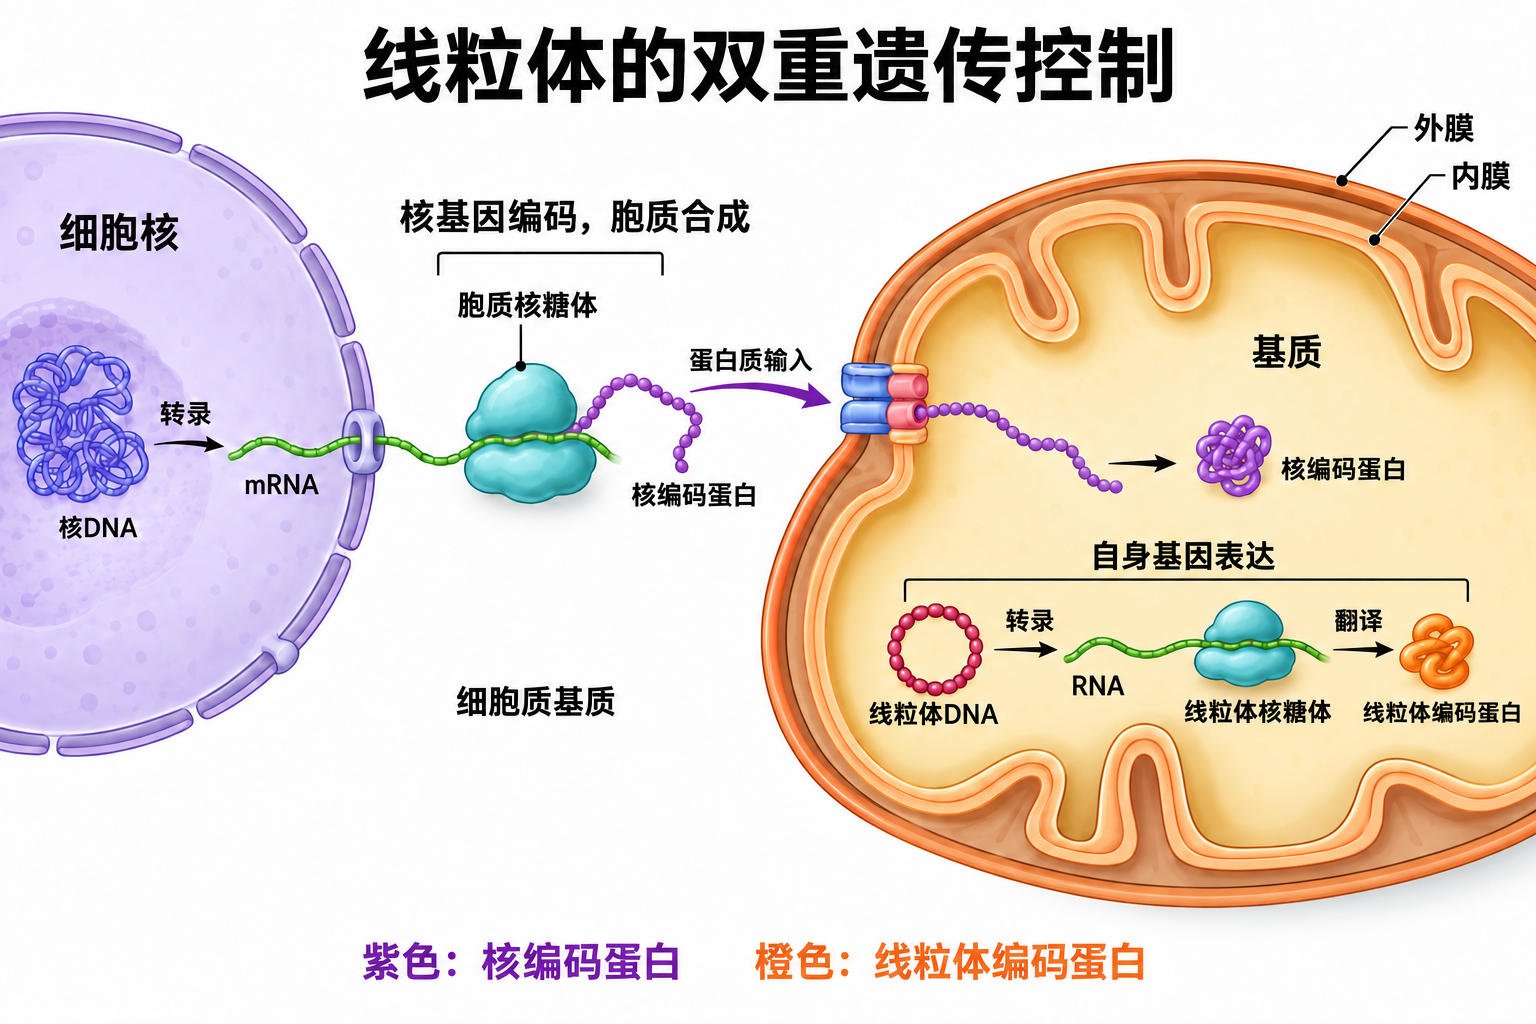 以线粒体为例:核DNA转录产生的mRNA在胞质核糖体上翻译,紫色核编码蛋白经膜转运系统输入线粒体;线粒体DNA在内部转录,RNA在线粒体核糖体上翻译,产生橙色线粒体编码蛋白。箭头表示基因表达和蛋白输入的方向。
细胞器自身编码的少量蛋白质多为高度疏水的膜蛋白亚基,如线粒体氧化磷酸化复合体的核心亚基和叶绿体光系统反应中心蛋白,这些蛋白难以在细胞质中合成后穿越膜结构,因此保留在细胞器内合成。核质互作的失调会导致细胞器功能缺陷,并触发逆行信号(retrograde signaling)通路,调整核基因表达以维持稳态。
四、遗传方式与疾病关联编辑本段
线粒体基因组在多数动物和植物中表现为母系遗传(maternal inheritance),即子代线粒体主要来自卵细胞。这种遗传方式使得线粒体DNA突变表现出非孟德尔遗传特征,并具有阈值效应和异质性(heteroplasmy):同一细胞内可同时存在野生型和突变型mtDNA,当突变型比例超过组织特异性阈值时才会出现病理表型。线粒体DNA突变与多种线粒体病相关,如Leber遗传性视神经病变(LHON)、线粒体脑肌病伴乳酸酸中毒和卒中样发作(MELAS)以及肌阵挛性癫痫伴破碎红纤维(MERRF)等。
在植物中,线粒体和叶绿体基因组的不育相关基因与核恢复基因共同作用,可导致细胞质雄性不育(cytoplasmic male sterility, CMS),这一现象已被广泛用于作物杂交育种。叶绿体基因组突变还可引起植物叶片黄化、斑驳及光合能力下降等表型。
五、生物学功能与调控编辑本段
半自主细胞器承担着细胞能量转换的核心功能。线粒体通过氧化磷酸化产生ATP,同时参与三羧酸循环、脂肪酸β-氧化、铁硫簇组装、钙缓冲和活性氧信号调控;叶绿体则完成光合作用的光反应与碳同化,并参与硫氮代谢、脂肪酸合成及植物免疫信号转导。此外,线粒体还是细胞凋亡的关键调控平台,其外膜通透化释放细胞色素c,触发caspase级联反应。
半自主细胞器的生物发生需要核基因组与细胞器基因组的精确协调。线粒体和叶绿体的分裂、融合、运动及降解(如线粒体自噬)受到一系列核编码GTP酶和动力相关蛋白的调控。当细胞能量需求或环境条件改变时,细胞器可通过融合与分裂动态调整其形态和功能,这一过程被称为细胞器动力学(organelle dynamics),并与细胞代谢重编程、衰老及应激响应密切相关。
六、研究方法与前沿展望编辑本段
研究半自主细胞器的经典方法包括细胞器分离与生化分析、电子显微镜观察、Southern印迹和实时定量PCR检测细胞器DNA拷贝数,以及蓝白斑筛选和细胞器转化技术。近年来,线粒体靶向荧光探针、单细胞组学、细胞器基因组编辑(如mito-TALEN、mito-ZFN及最近发展的碱基编辑工具)以及高分辨率冷冻电镜技术,为解析半自主细胞器的基因表达调控、蛋白转运机制和结构功能关系提供了前所未有的分辨率。
未来研究的重要方向包括:核质互作的信号网络与逆行调控机制、细胞器基因组突变与衰老及神经退行性疾病的关系、叶绿体与线粒体基因表达在植物逆境适应中的作用,以及基于半自主细胞器工程化的合成生物学应用。深入理解半自主细胞器的生物学,不仅有助于揭示真核细胞进化的奥秘,也为线粒体病、代谢疾病和作物改良提供潜在靶点。
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。