
跨界信号传导
概念界定与历史渊源编辑本段
跨界信号传导(Crosstalk)最初源于电子工程领域,指不同线路或系统之间非预期的信号耦合。20世纪90年代,随着细胞内信号转导研究的深入,科学家发现经典的线性通路模型无法解释许多实验现象,例如不同生长因子受体激活相同下游效应器、或一条通路的激活改变另一条通路的敏感性。1997年,Jordan等人在《Current Biology》上系统讨论了MAPK级联通路之间的交叉调控,标志着该概念正式进入细胞生物学主流视野。此后,随着高通量组学与定量建模技术的发展,跨界信号传导的内涵不断扩展,现已涵盖从分子互作到细胞群体乃至组织水平的广泛层次。
分子机制与主要类型编辑本段
跨界信号传导的实现依赖于多种分子机制,可归纳为以下几类:
1. 共享组件与竞争性结合:不同通路共用受体、激酶、衔接蛋白或转录因子。例如,胰岛素与胰岛素样生长因子1(IGF-1)信号共享胰岛素受体底物(IRS)蛋白,导致代谢与生长信号相互干扰。此外,衔接蛋白Grb2可同时被多种受体酪氨酸激酶招募,形成竞争性信号分流。
2. 交叉磷酸化与信号整合:一条通路的激酶可直接磷酸化另一条通路的组件。例如,蛋白激酶A(PKA)可磷酸化并抑制Raf-1,从而在G蛋白偶联受体(GPCR)与MAPK通路之间建立抑制性跨界。反之,表皮生长因子受体(EGFR)的激活可反式激活GPCR通路中的Src家族激酶,形成正反馈环路。
3. 支架蛋白与信号枢纽:支架蛋白(如KSR、β-arrestin)通过物理连接多个通路组件,决定信号的时空特异性。β-arrestin不仅介导GPCR脱敏,还可作为支架激活ERK1/2,实现GPCR向MAPK通路的信号转导,这是跨界信号传导的经典范例。
4. 第二信使与代谢偶联:钙离子、cAMP、活性氧(ROS)和脂质第二信使等可在不同通路间传递信息。例如,线粒体ROS可氧化并抑制PTEN,从而激活PI3K/Akt通路,将代谢应激信号与生长信号耦合。
5. 反馈与前馈环路:负反馈与正反馈环路是跨界信号传导的系统级实现方式。例如,ERK对上游Raf的负反馈磷酸化可限制信号幅度,而mTORC1对IRS-1的负反馈则导致胰岛素抵抗,是代谢疾病中的重要跨界机制。
典型范例编辑本段
GPCR与受体酪氨酸激酶(RTK)的跨界:GPCR通过激活基质金属蛋白酶(MMP)释放膜结合型EGF样配体,或通过Src激酶反式激活EGFR,实现生长信号与趋化信号的整合。这一机制在肿瘤侵袭和血管生成中尤为突出。
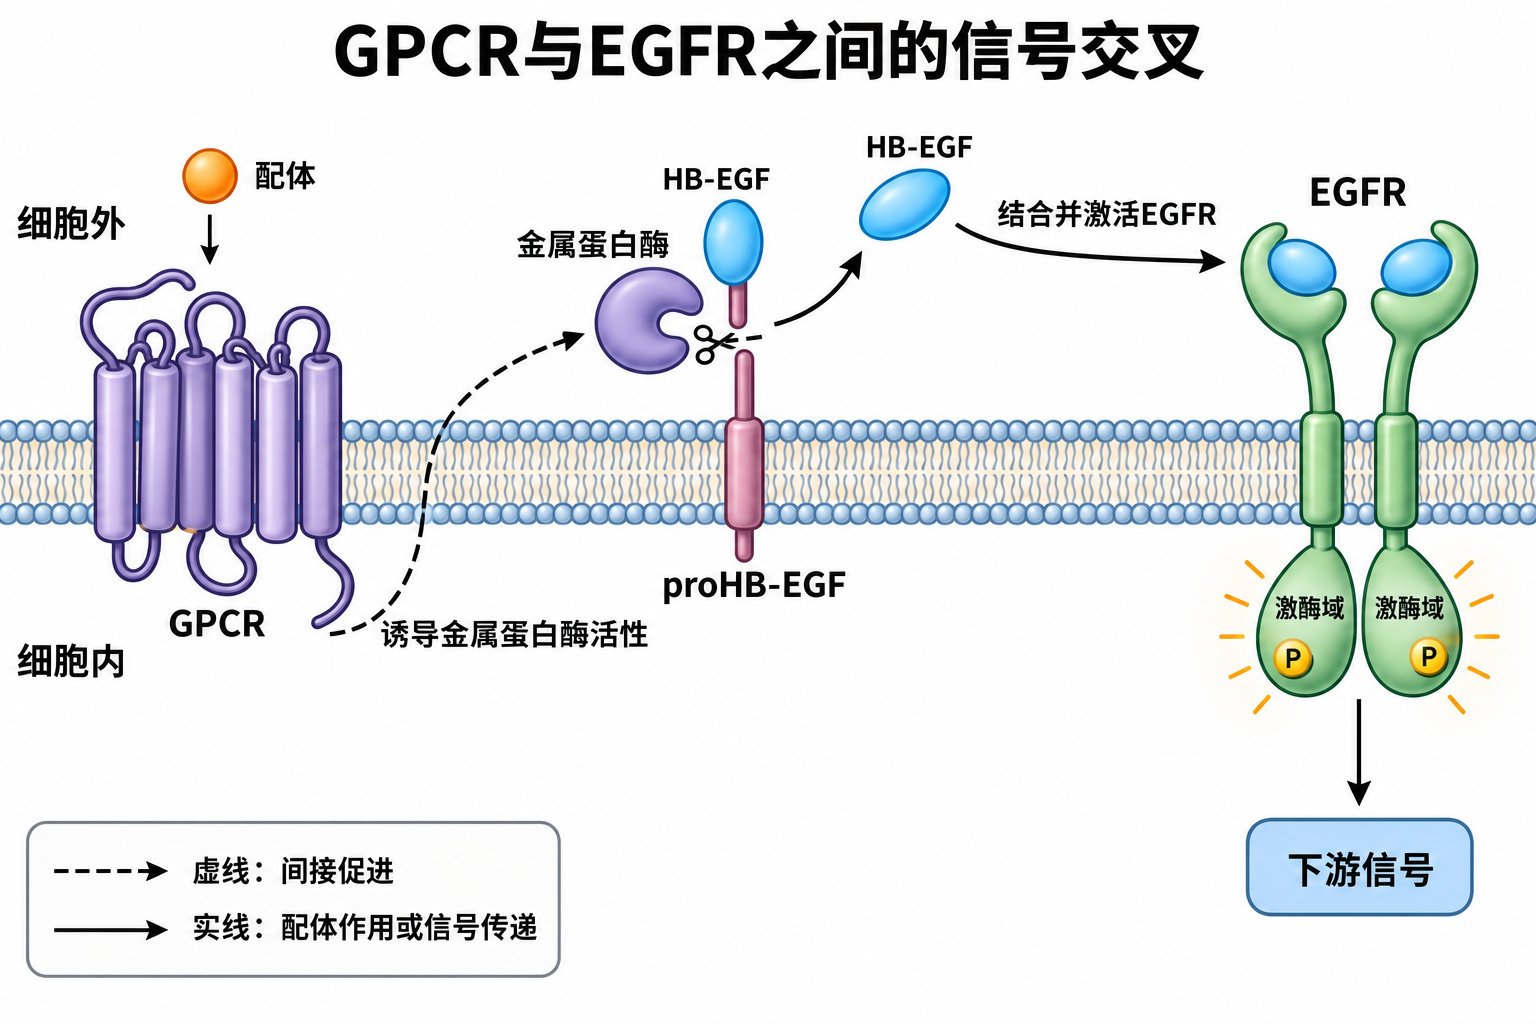 GPCR受配体刺激后促进金属蛋白酶活性,膜外proHB-EGF被剪切并释放HB-EGF。HB-EGF结合并激活EGFR,进而传递下游信号;虚线表示间接促进。
Wnt与Notch通路的交互:在干细胞龛与发育过程中,Wnt通过β-catenin影响Notch配体Dll1的表达,而Notch的胞内结构域(NICD)又可与β-catenin竞争转录共激活因子,形成双向调控。这种跨界决定了细胞命运抉择的阈值。
炎症与代谢信号:IKKβ/NF-κB通路在炎症中被激活后,可通过磷酸化IRS-1丝氨酸残基干扰胰岛素信号,将免疫信号与代谢稳态联系起来,是肥胖相关胰岛素抵抗的核心机制之一。
植物激素的跨界:在拟南芥中,茉莉酸与水杨酸通路通过共享转录共调节因子NPR1与MYC2形成拮抗,介导防御反应的优先级分配,体现了跨界信号传导在植物免疫中的普遍性。
系统生物学视角与定量建模编辑本段
跨界信号传导使信号网络呈现非线性、鲁棒性和情境依赖性。系统生物学通过常微分方程、布尔网络和贝叶斯网络等方法对跨界进行定量描述。例如,对EGFR-MAPK与PI3K-Akt通路的联合建模揭示了反馈强度决定细胞对单靶点抑制剂的敏感性,为理解耐药性提供了框架。近年来,单细胞信号分析技术(如质谱流式、单细胞磷酸化蛋白组学)进一步揭示了跨界信号传导在细胞群体中的异质性。
病理意义与药物开发编辑本段
跨界信号失调与多种疾病密切相关。在肿瘤中,BRAF抑制剂可因EGFR反馈上调而产生耐药,联合抑制EGFR与BRAF可部分克服耐药,这是跨界信号传导指导临床用药的典型例证。在免疫治疗中,PD-1信号与T细胞受体(TCR)信号的跨界影响决定T细胞耗竭状态。在代谢疾病中,肠促胰岛素信号与胰岛素信号的交叉调节成为多受体激动剂设计的依据。在神经科学中,多巴胺D2受体与腺苷A2A受体的异源二聚化是跨界信号传导在受体层面的体现,已成为帕金森病药物开发的重要靶点。多靶点药物与网络药理学正是基于跨界信号传导原理,从单一通路阻断转向网络调控。
研究挑战与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。