
cAMP响应元件
cAMP响应元件(cAMP response element,CRE)是真核生物基因组中一段短小的DNA调控序列,因最初被发现能够介导细胞内cAMP水平升高所引发的基因转录激活而得名。CRE的经典共识序列为TGACGTCA,属于八聚体回文结构,其核心五核苷酸序列CGTCA对转录因子CREB(cAMP response element-binding protein)的特异性识别至关重要。CRE通常位于靶基因启动子或增强子区域,通过与CREB家族转录因子结合,将胞外信号(如激素、神经递质、生长因子)经cAMP-PKA信号通路传递至细胞核,进而调控基因表达程序。
发现与历史编辑本段
CRE的发现可追溯至20世纪80年代对cAMP诱导基因转录机制的研究。1986年,Montminy和Bilezikjian在研究生长抑素(somatostatin)基因时,鉴定出该基因启动子中一段对cAMP响应所必需的DNA序列,并将其命名为cAMP响应元件。随后,1990年前后,CREB作为结合该元件的转录因子被克隆和鉴定,其bZIP结构域与CRE的相互作用机制也被阐明。这些开创性工作确立了“信号从细胞膜到细胞核”的转录调控范式,CREB也因此成为信号转导研究的明星分子。
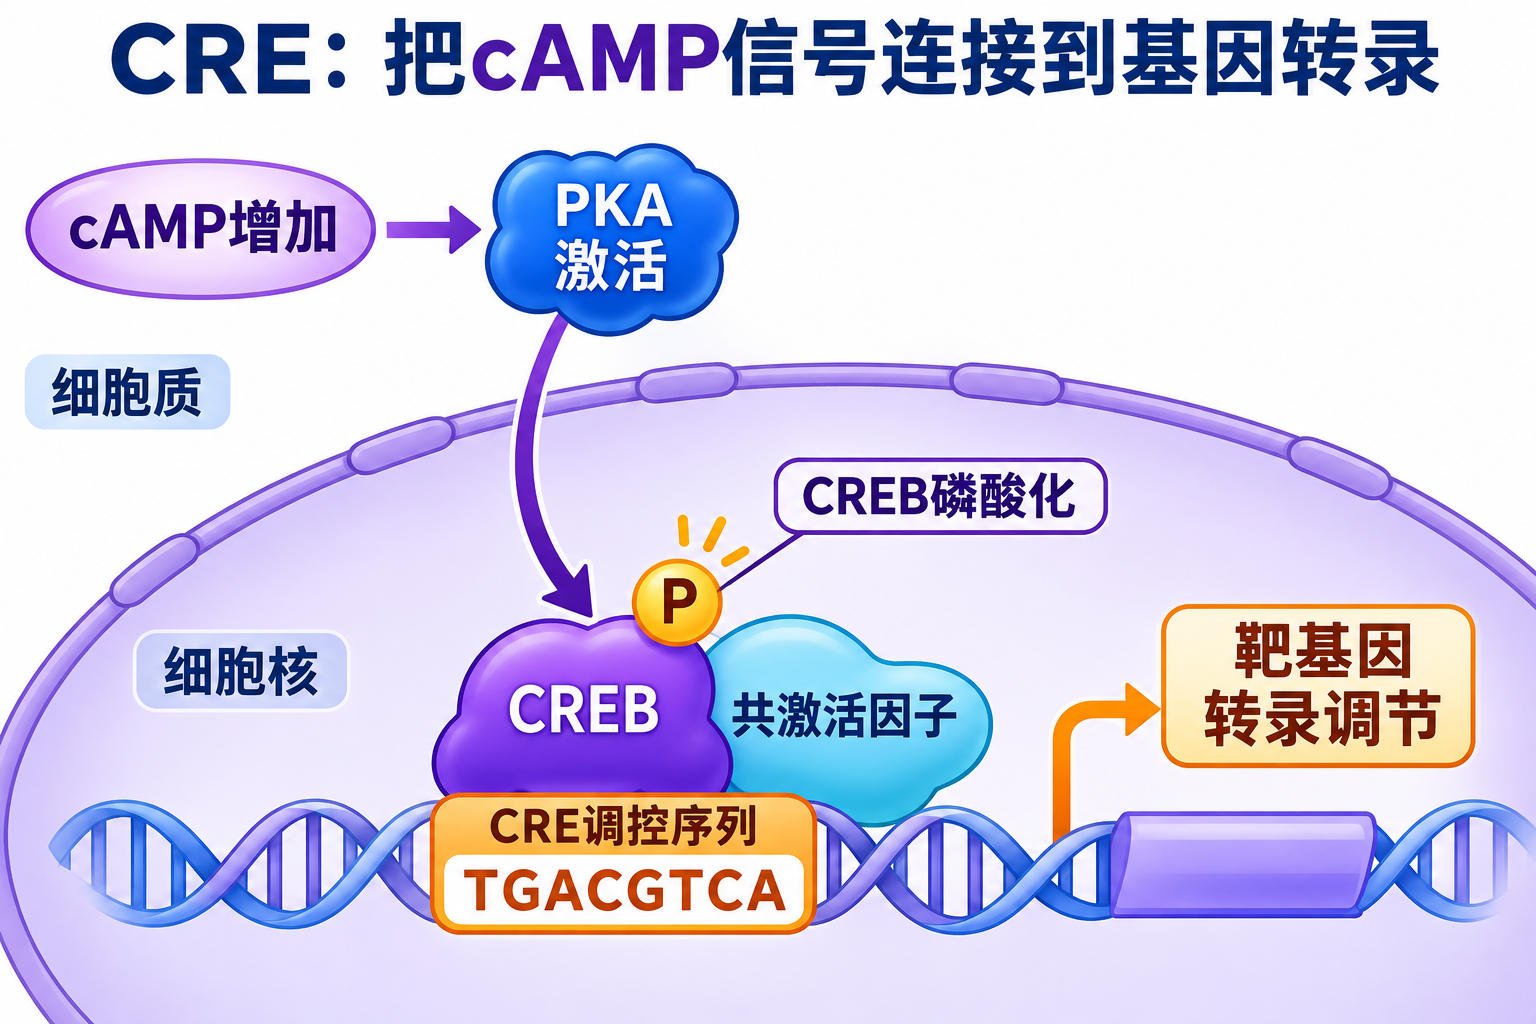 cAMP激活PKA,促使CREB磷酸化;CREB结合DNA上的CRE调控序列,并与共激活因子共同调节靶基因转录。
序列特征与结构基础编辑本段
CRE的共识序列TGACGTCA是一个完美的回文结构,理论上可形成二聚体结合平台。CREB以二聚体形式通过其碱性亮氨酸拉链(bZIP)结构域与CRE的大沟结合,每个单体识别半个位点。结构生物学研究表明,CREB的碱性区域与DNA磷酸骨架形成特异性氢键,而亮氨酸拉链则介导二聚化。除经典CRE外,基因组中还存在CRE样元件(CRE-like element),其序列与共识序列存在1-2个碱基差异,通常具有较低的CREB亲和力,但可能被其他bZIP转录因子(如ATF、AP-1家族成员)识别,从而增加调控的复杂性。
信号转导机制编辑本段
CRE介导的转录激活遵循一条经典的信号级联通路:胞外配体(如肾上腺素、胰高血糖素、神经递质)与G蛋白偶联受体结合,激活腺苷酸环化酶(AC),催化ATP生成cAMP;cAMP与蛋白激酶A(PKA)的调节亚基结合,释放催化亚基;催化亚基进入细胞核,在Ser133位点磷酸化CREB。磷酸化的CREB招募共激活因子CBP(CREB结合蛋白)或p300,后者具有组蛋白乙酰转移酶活性,通过乙酰化组蛋白改变染色质结构,并桥接RNA聚合酶II转录机器,从而启动靶基因转录。此外,CREB的活性还受到多种翻译后修饰(如Ser142磷酸化、SUMO化、乙酰化)和信号通路(如CaMK、MAPK、PI3K/Akt)的精细调控,使CRE成为整合多种信号输入的“信号整合器”。
生物学功能编辑本段
CRE的生物学功能极其广泛,几乎涵盖所有组织类型。在神经系统中,CREB通过CRE调控BDNF、c-Fos、Arc等基因,参与突触可塑性、长时程增强(LTP)和记忆形成。在代谢调节中,CRE介导胰高血糖素和肾上腺素对糖异生关键酶(如PEPCK、G6Pase)的转录激活,维持血糖稳态。在免疫系统中,CRE参与调控IL-2、TNF-α等细胞因子基因的表达。在内分泌系统中,CRE调控生长抑素、促肾上腺皮质激素释放激素等激素基因。此外,CRE还参与细胞增殖、分化、存活和昼夜节律等过程。
病理意义与药物靶点编辑本段
CRE信号通路的异常与多种疾病密切相关。在肿瘤中,CREB的过度激活可促进细胞增殖和存活,并与白血病、神经内分泌肿瘤等的发生发展相关。在神经退行性疾病中,CREB功能低下与阿尔茨海默病、亨廷顿病中的认知障碍有关。在代谢疾病中,CRE介导的糖异生过度激活参与2型糖尿病的高血糖。在成瘾研究中,CREB在奖赏回路中的适应性变化与药物依赖相关。因此,CREB-CRE轴被认为是潜在的药物靶点,针对CREB活性调节的策略正在探索之中。
研究方法与技术编辑本段
研究CRE功能常用的实验方法包括:报告基因分析(将CRE序列串联克隆至荧光素酶或GFP报告基因上游)、染色质免疫沉淀(ChIP)及ChIP-seq(检测CREB在基因组上的结合位点)、电泳迁移率变动分析(EMSA)和DNAPull-down(验证CRE序列与CREB的体外结合)、以及CRISPR/Cas9介导的CRE元件敲除或突变。这些技术共同构成了从序列到功能的多层次研究体系。
进化保守性与意义编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。