
Wnt/PCP通路
引言编辑本段
Wnt/PCP(平面细胞极性,Planar Cell Polarity)通路是Wnt信号网络中的一条非经典分支,以建立细胞在组织平面内的不对称性为核心特征。与依赖β-catenin的经典Wnt通路不同,Wnt/PCP通路通过激活小GTP酶(RhoA、Rac1)和JNK级联,重塑细胞骨架,从而驱动细胞极性、定向迁移和形态发生。自20世纪90年代在果蝇中鉴定出PCP基因以来,该通路已成为发育生物学、细胞生物学和疾病研究的热点领域。
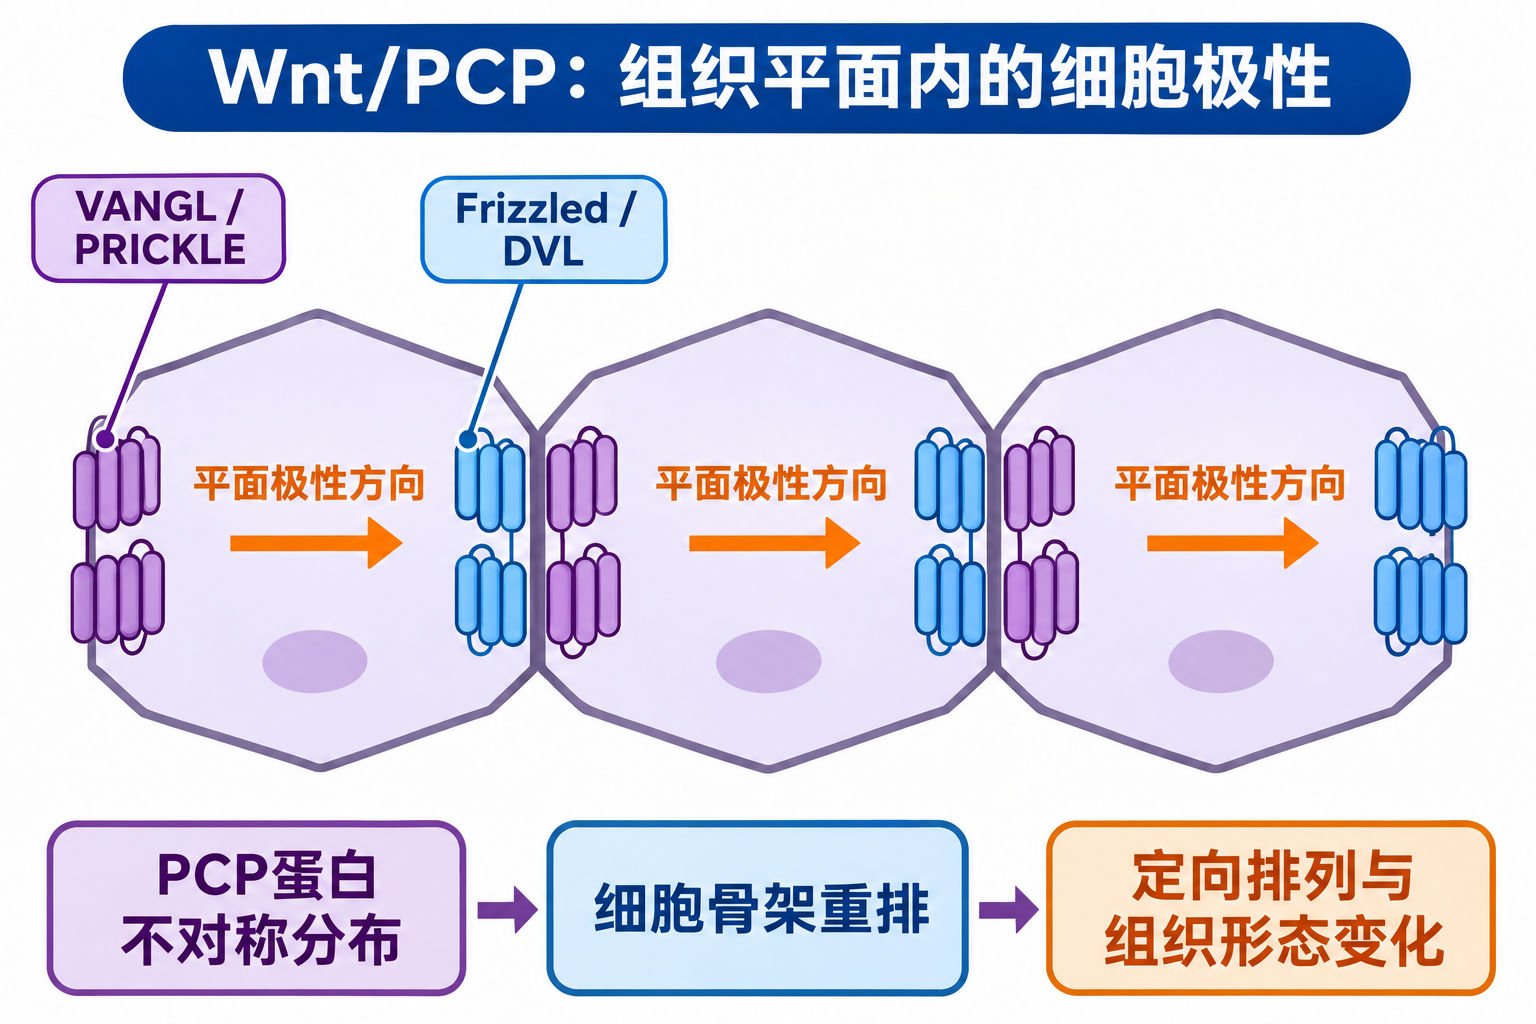 相邻细胞的PCP蛋白在组织平面内呈同向不对称分布,Frizzled/DVL与VANGL/PRICKLE位于相对侧,协调细胞骨架和定向排列。
分子组成编辑本段
Wnt/PCP通路的核心组件高度保守,主要包括:Wnt配体(如Wnt5a、Wnt11、Wnt4),通常为非经典Wnt;Frizzled(Fz)受体,七次跨膜蛋白;Dishevelled(Dvl),支架蛋白;Prickle(Pk),含LIM结构域;Vangl(Van Gogh样蛋白),四次跨膜蛋白;以及Flamingo/CELSR,钙黏蛋白样受体。此外,下游效应分子包括RhoA、Rac1、JNK、Rho激酶(ROCK)和肌球蛋白等。
信号转导机制编辑本段
在PCP建立过程中,核心蛋白在细胞膜上呈现不对称分布:Frizzled、Dishevelled和Flamingo富集于细胞一侧,而Vangl和Prickle富集于对侧。这种互斥定位依赖于蛋白质间的相互作用和磷酸化修饰。Wnt配体结合Frizzled受体后,招募Dvl至膜上,Dvl通过其DIX和DEP结构域与Frizzled及下游因子结合。Dvl的聚合物形成能够激活RhoA和Rac1,进而通过ROCK和JNK调节肌动蛋白聚合和微管稳定性,最终导致细胞骨架的不对称重排。同时,Vangl-Prickle复合物通过抑制Dvl活性来维持极性轴的对立格局。
生物学功能编辑本段
Wnt/PCP通路在胚胎发育中发挥广泛作用。在原肠胚形成中,该通路调控汇聚延伸运动(convergent extension),通过细胞重排使组织沿前后轴延伸。在神经管闭合过程中,PCP信号介导神经上皮细胞的极性排列和顶端收缩,缺乏该通路会导致神经管缺陷(如脊柱裂)。在内耳发育中,Wnt/PCP通路控制耳蜗毛细胞的静纤毛束定向排列,形成V形结构。此外,该通路还参与肢体发育、肾脏分支形态发生、心脏流出道形成和毛囊定向生长。在成体中,Wnt/PCP通路参与组织损伤修复、干细胞自我更新和定向迁移,例如在肠道上皮和皮肤中调控细胞迁移。
调控机制编辑本段
Wnt/PCP通路的活性受多层调控。细胞外拮抗剂如分泌型Frizzled相关蛋白(SFRP)和Wnt抑制因子(WIF)可竞争性结合Wnt配体。跨膜蛋白Ror2作为Wnt5a的共受体,增强PCP信号。胞内磷酸化修饰对核心蛋白的定位和稳定性至关重要,例如Dvl的磷酸化由CK1ε和PAR1等激酶介导。泛素化降解途径(如E3连接酶Smurf)也参与调节Vangl和Prickle的水平。此外,非编码RNA(如miR-1)和表观遗传修饰也被发现能调控PCP基因表达。
研究方法编辑本段
研究Wnt/PCP通路的常用方法包括:基因敲除/敲降模型(小鼠、斑马鱼、非洲爪蟾和果蝇)观察表型;免疫荧光和活细胞成像追踪核心蛋白的亚细胞定位;荧光共振能量转移(FRET)检测蛋白相互作用;转录组学和蛋白质组学筛选新组件;以及类器官培养模拟组织极性。此外,利用CRISPR/Cas9技术构建突变体是当前的主流策略。
病理意义编辑本段
Wnt/PCP通路异常与多种人类疾病密切相关。神经管缺陷(如无脑儿、脊柱裂)与PCP基因(VANGL1、VANGL2、CELSR1)突变有关。纤毛病(如多囊肾病、视网膜色素变性)中PCP信号调控纤毛定位和功能。癌症中,Wnt/PCP通路通过调控细胞迁移和侵袭促进转移,例如在乳腺癌和黑色素瘤中Wnt5a表达异常。骨骼疾病如Robinow综合征由ROR2或WNT5A突变引起。此外,该通路还参与精神疾病和代谢紊乱的病理过程。
总结与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。