
神经诱导
概念与历史编辑本段
神经诱导(neural induction)是胚胎发育过程中,一部分细胞(诱导者)通过信号传递影响另一部分细胞(反应者),使其从默认的表皮命运转变为神经命运的过程。这一概念源于Spemann和Mangold(1924)的经典实验:他们将蝾螈胚胎背唇(胚孔背唇)组织移植到宿主胚胎的腹侧,结果诱导宿主组织形成次级神经管和体轴结构。背唇因此被称为“组织者”(organizer),即Spemann组织者。该实验首次证明胚胎发育中存在诱导现象,并开启了实验胚胎学的新纪元。
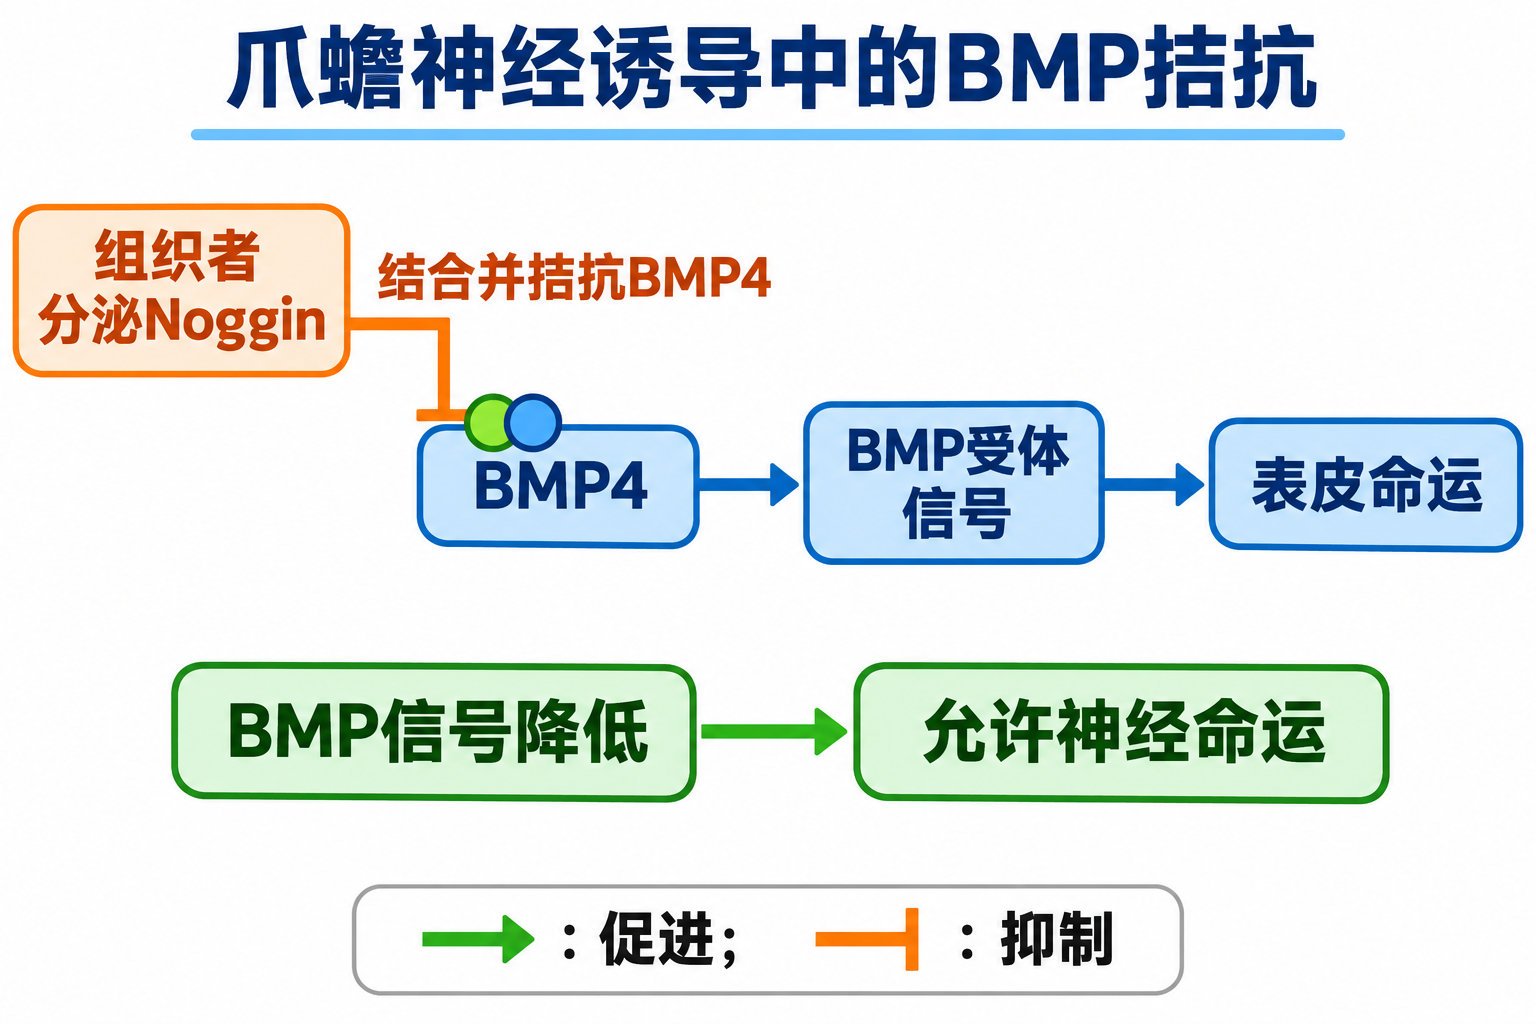 在爪蟾神经诱导模型中,组织者分泌的Noggin拮抗BMP4;BMP信号降低后,外胚层细胞可获得神经命运。
此后,研究重点转向寻找诱导信号的分子本质。20世纪80-90年代,随着分子生物学技术的进步,科学家发现组织者分泌多种蛋白,包括Noggin、Chordin、Follistatin等,它们能够诱导神经组织形成。同时,BMP(骨形态发生蛋白)信号通路被鉴定为神经诱导的关键调控通路。默认模型(default model)提出,外胚层细胞在缺乏BMP信号时倾向于神经命运,而组织者通过分泌BMP拮抗剂创造神经诱导区域。
分子机制与信号通路编辑本段
神经诱导的分子机制涉及多个信号通路的协同与拮抗,核心是BMP信号的抑制。在胚胎早期,外胚层细胞普遍表达BMP4,其信号通过BMP受体激活Smad1/5/8,诱导表皮基因表达。组织者分泌的BMP拮抗剂如Noggin、Chordin和Follistatin,通过直接结合BMP配体或干扰其与受体结合,阻断BMP信号,从而允许神经基因(如Sox2、Otx2)表达。Chordin的活性还受到金属蛋白酶BMP1/Tolloid的调控,形成复杂的调控网络。
除BMP抑制外,FGF信号通路在神经诱导中发挥重要作用。FGF通过抑制BMP信号和激活神经特异性转录因子,促进神经前体细胞的形成。Wnt信号通路则在不同发育阶段具有双重作用:早期Wnt抑制神经诱导,而后期Wnt促进神经前体细胞增殖和分化。视黄酸(RA)信号参与后脑和脊髓的区域化。此外,Notch、Hedgehog等通路也参与神经管的模式形成。这些信号通路相互作用,形成精确的时空动态调控网络,确保神经板在正确的位置和时间内形成。
组织者的作用与诱导类型编辑本段
Spemann组织者(两栖类背唇、鱼类胚盾、鸟类原条、哺乳类节点)是神经诱导的核心组织。组织者不仅诱导神经组织,还参与轴中胚层的形成和前后轴的模式化。根据诱导信号的性质,神经诱导可分为“平面诱导”和“垂直诱导”:前者指信号沿平面传播,后者指信号通过细胞间接触或扩散传递。组织者分泌的诱导信号包括Noggin、Chordin、Cerberus、Frzb等,它们共同创造了一个BMP信号低下的微环境,使外胚层细胞获得神经命运。
此外,神经诱导具有区域特异性。组织者不同区域分泌不同信号分子,如Cerberus诱导前脑,而Wnt和FGF信号则参与后脑和脊髓的诱导。这种区域化信号梯度确保了神经系统前后轴的正确形成。近年来,研究还发现组织者不仅诱导神经组织,还通过抑制BMP信号诱导中胚层和内胚层,体现了其在胚胎发育中的核心地位。
模型与争议编辑本段
默认模型是解释神经诱导的主流理论,其核心观点是:外胚层细胞具有向神经分化的内在倾向,而BMP信号是抑制神经命运、促进表皮分化的关键因素。组织者通过分泌BMP拮抗剂解除抑制,从而诱导神经组织。大量实验支持该模型,例如在胚胎中注射Noggin mRNA可在腹侧异位诱导神经组织,而BMP受体突变则导致神经化表型。
然而,默认模型并非完美。一些研究表明,即使阻断BMP信号,部分外胚层细胞仍不能形成神经组织,提示其他信号(如FGF、Wnt)的必要性。此外,神经诱导的启动可能早于组织者形成,且不同物种间机制存在差异。因此,学者提出“激活-转化”模型:即先由FGF等信号激活神经前体状态,再由BMP抑制信号转化并稳定神经命运。目前,领域内普遍认为神经诱导是多信号协同作用的结果,而非单一通路决定。
研究意义与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。