
细胞质雄性不育
概念与生物学意义编辑本段
细胞质雄性不育(Cytoplasmic Male Sterility, CMS)是植物界中一种母系遗传的生殖隔离现象,表现为植株雌蕊发育正常、可接受外来花粉并结实,但自身不能产生有活力或可育的花粉。这种性状由线粒体基因组(mtDNA)中的异常开放阅读框(ORF)所编码的嵌合蛋白引起,通常与特定的核背景互作。CMS在自然界中广泛存在于被子植物中,已被发现于超过150个属、300余种植物中。在农业生产上,CMS是杂种优势利用的核心授粉控制系统,免去了人工去雄的繁琐操作,显著降低了杂交种子的生产成本,对水稻、玉米、油菜、高粱、向日葵等作物的杂交育种具有革命性意义。
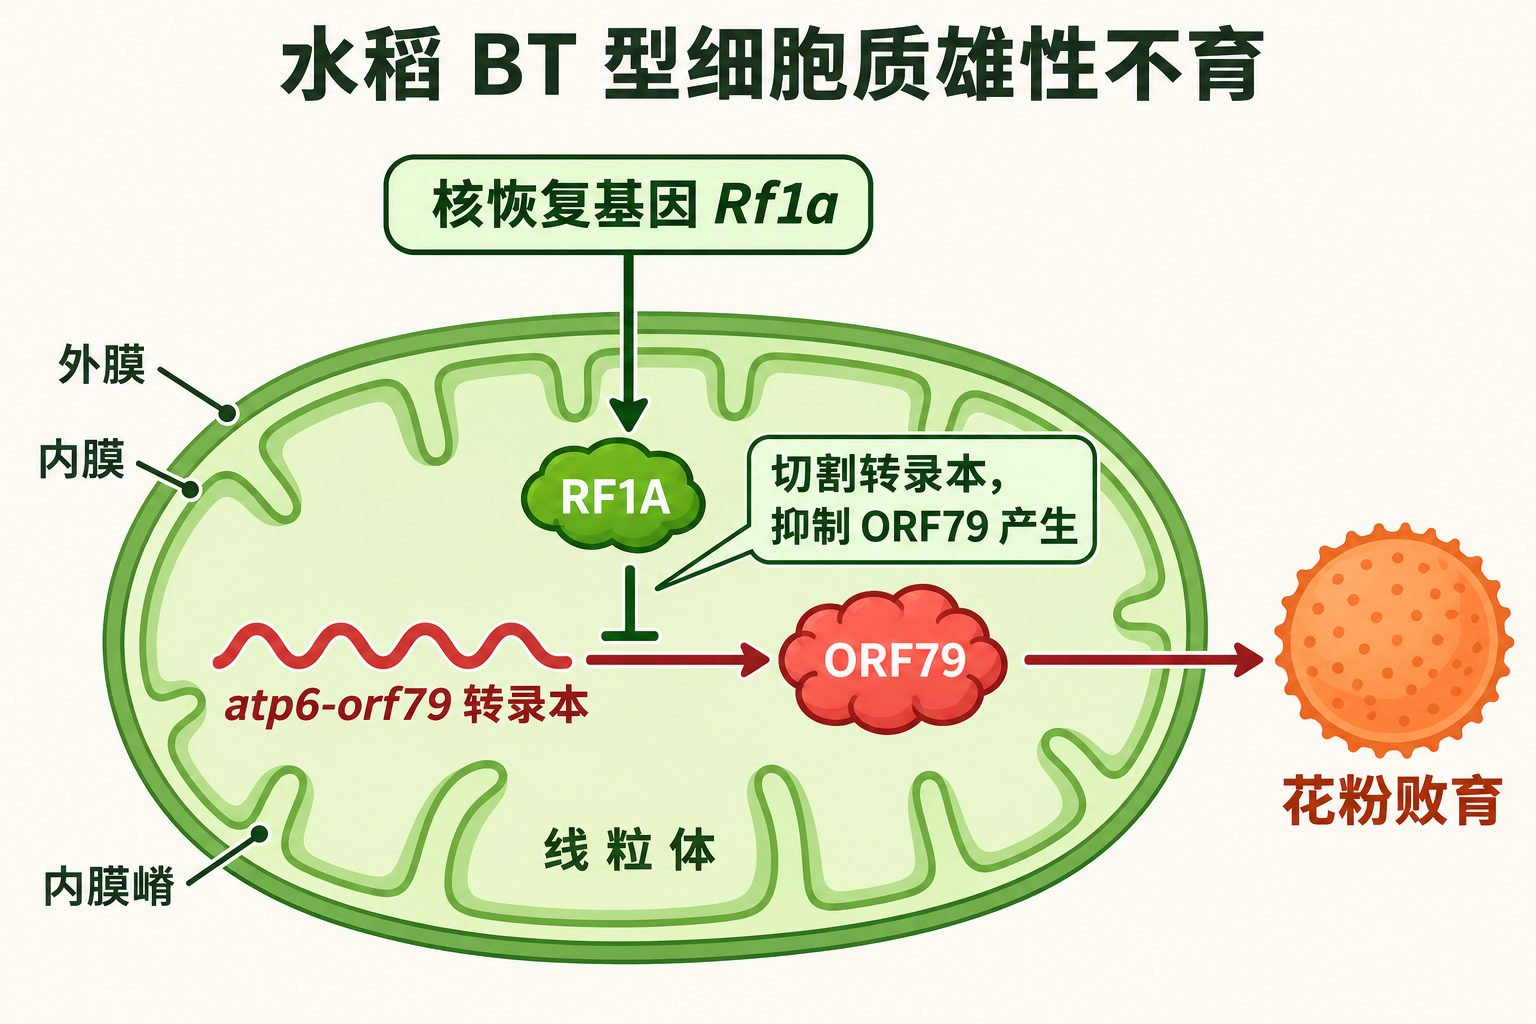 水稻 BT 型雄性不育相关的线粒体转录本产生 ORF79,影响花粉育性。核恢复基因 Rf1a 编码的 RF1A 进入线粒体,通过切割相关转录本抑制 ORF79 产生。
分子基础:线粒体基因组中的异常开放阅读框编辑本段
CMS的分子机制核心在于线粒体基因组重排产生的嵌合基因。这些基因通常由部分线粒体功能基因的5'侧翼序列或编码区与未知序列融合而成,形成新的开放阅读框(如orf79、orfH79、orf522、atp6-orf等)。其转录本和翻译产物仅在特定发育阶段(如小孢子发生期)或特定组织中表达,干扰线粒体的正常功能。例如,水稻BT型CMS相关的orf79编码一个毒性蛋白,该蛋白定位在线粒体并诱发细胞程序性死亡(PCD),导致花粉母细胞或绒毡层细胞异常降解。玉米T型CMS的urf13基因编码的URF13蛋白可在线粒体内膜上形成孔道,与真菌毒素T-毒素结合后引起线粒体通透性转换孔开放,导致细胞死亡。这些发现确立了“线粒体嵌合基因→蛋白毒性→花粉败育”的基本范式。
核恢复基因(Rf)与CMS/Rf系统编辑本段
CMS的育性可被细胞核中的显性恢复基因(Rf)所恢复,形成经典的CMS/Rf遗传互作系统。大多数Rf基因编码含五肽重复(PPR)结构域的蛋白,靶向线粒体,通过转录后调控(如RNA切割、降解或编辑)抑制有害ORF的表达。例如,水稻Rf1和Rf1a编码PPR蛋白,可特异性切割orf79的转录本;Rf2则通过影响线粒体RNA编辑来恢复育性。玉米Rf2编码乙醛脱氢酶(ALDH),通过清除活性醛类解除URF13的毒性。CMS/Rf系统体现了核质协同进化的分子博弈:线粒体自私遗传因子试图通过CMS提高母系传递效率,而核基因组则演化出Rf基因来恢复雄性育性。这一系统不仅是研究核质互作的理想模型,也为利用CMS进行杂种优势育种提供了分子靶标。
生理生化机制与细胞学特征编辑本段
CMS的发生涉及能量代谢紊乱、活性氧(ROS)爆发和细胞程序性死亡等过程。在败育花粉发育过程中,线粒体呼吸链复合物活性下降,ATP供应不足,导致小孢子发育停滞。同时,ROS水平升高,引发氧化应激,破坏膜脂和蛋白质。细胞学观察显示,CMS植株的花药绒毡层细胞过早降解或异常肥大,小孢子母细胞减数分裂后无法形成正常四分体,或小孢子释放后迅速退化。例如,水稻野败型CMS的花粉败育发生在单核晚期,表现为细胞质收缩、细胞核降解;而红莲型CMS则败育更早,在四分体时期即出现异常。这些差异反映了不同CMS类型在发育时序和分子通路上的异质性。
在作物杂种优势利用中的应用编辑本段
CMS是杂交种子生产中最经济有效的授粉控制系统。以水稻为例,中国自20世纪70年代起广泛利用野败型(WA)、红莲型(HL)和BT型CMS三系配套,实现了杂交水稻的大面积推广。在玉米中,T型CMS曾因对玉米小斑病T小种敏感而引发1970年美国南方玉米叶枯病大流行,此后转向利用S型和C型CMS。油菜中Polima CMS和Ogu CMS被广泛用于杂交种生产。近年来,随着分子标记辅助选择和基因编辑技术的发展,CMS/Rf系统的定向创制和精准调控成为可能。例如,利用CRISPR/Cas9技术敲除Rf基因可人工创建CMS系,为杂种优势利用提供了新策略。
进化生物学视角编辑本段
CMS被视为线粒体基因组中“自私”遗传因子的典型代表。由于线粒体通过母系遗传,一个导致雄性不育的突变可增加母系向杂交后代传递的机会,从而在群体中扩散。然而,核基因组与线粒体基因组利益不一致,促使核基因组演化出Rf基因来抑制CMS,形成持续的进化军备竞赛。比较基因组学揭示,CMS相关ORF在不同物种中独立起源,具有高度的谱系特异性,而Rf基因则多为PPR基因家族扩增的产物。这种动态平衡解释了自然界中CMS与恢复基因多态性的维持,也为理解植物生殖隔离与物种形成提供了线索。
研究前沿与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。
如果您认为本词条还有待完善,请 编辑
上一篇 岩藻黄素-叶绿素a/c蛋白复合体