
病毒进化
病毒进化的基本概念与历史脉络编辑本段
病毒进化是研究病毒遗传物质在时间维度上变化规律的科学分支,旨在阐明病毒多样性的起源、演化动力及其与宿主、环境的相互作用。病毒作为专性细胞内寄生者,其演化速率和模式显著区别于自由生活的生物。20世纪70年代,RNA噬菌体Qβ的序列分析首次揭示RNA病毒突变率极高,其后随着PCR测序与深度测序技术的发展,病毒进化研究从表型描述转向群体遗传学与基因组水平。病毒进化理论的核心观点包括:病毒以准种形式存在,即同一宿主内存在大量密切相关的变异基因组;突变、重组与重配是遗传变异的三大来源;自然选择、遗传漂变与基因流共同决定等位基因频率的变化。
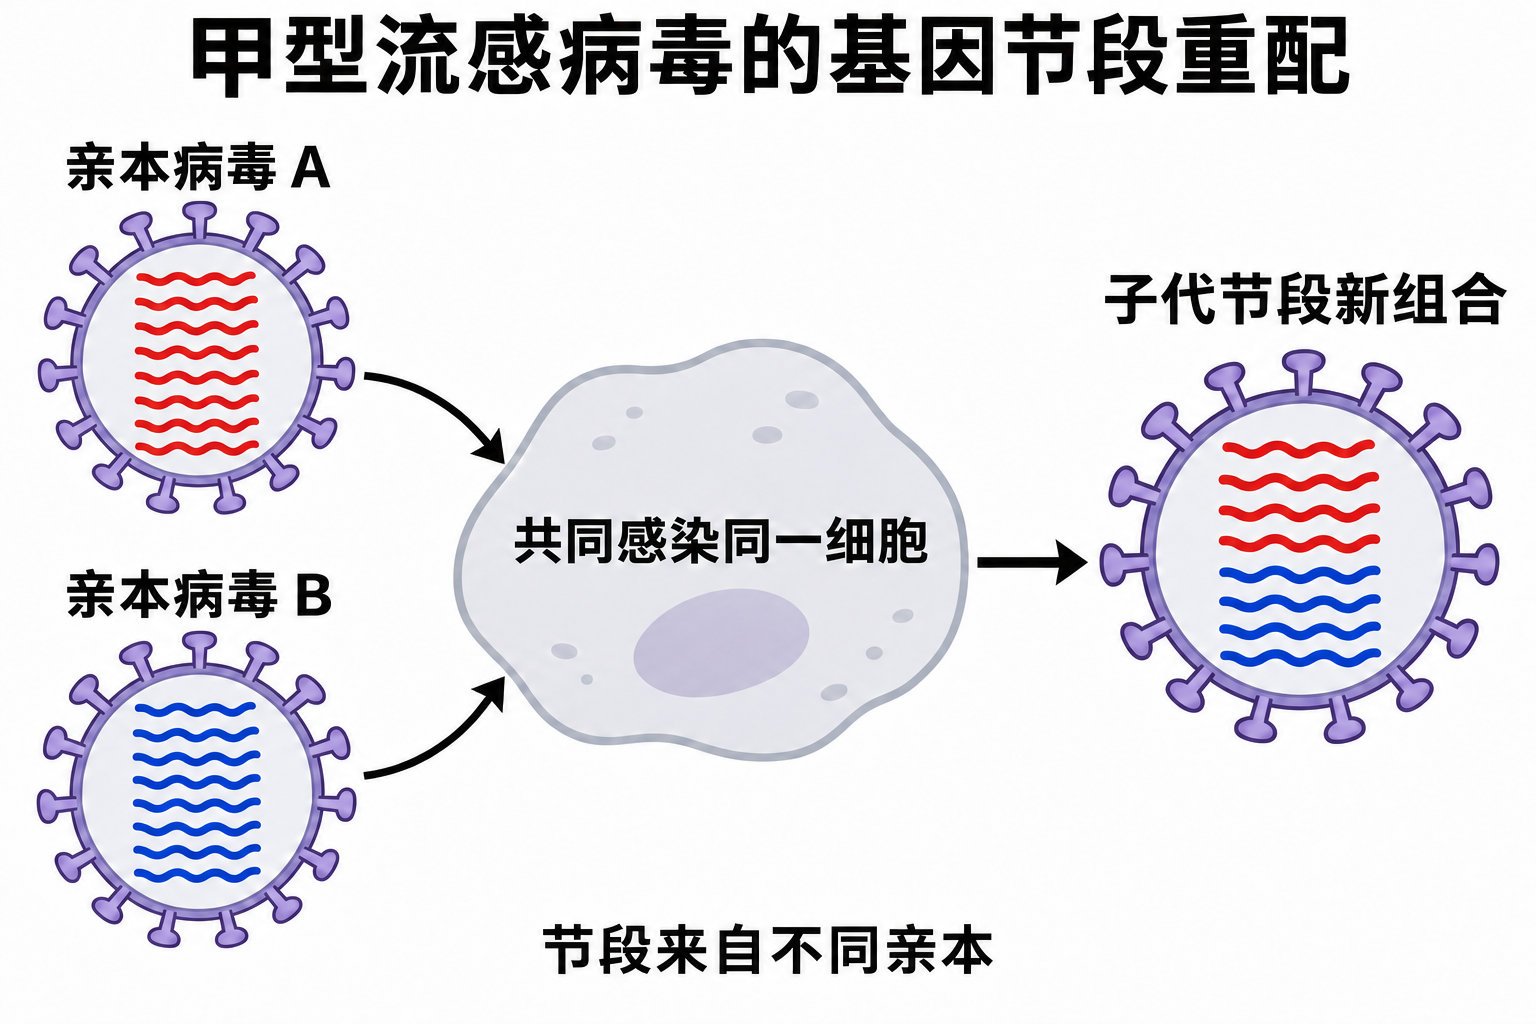 两种甲型流感病毒共同感染同一细胞时,其八个基因组节段可在子代中形成不同来源的新组合。红、蓝线条表示两种亲本来源的节段。
病毒遗传变异的来源编辑本段
突变是病毒进化最基本的驱动力。RNA病毒依赖的RNA聚合酶缺乏校读功能,突变率通常为每复制一次每个位点10-6至10-4,而DNA病毒因聚合酶具有校读活性,突变率低至10-8至10-6。这种差异导致RNA病毒在短期内积累大量遗传变异,例如流感病毒与新冠病毒在流行过程中持续产生新的谱系。重组指不同病毒基因组间交换片段,分为同源重组与非同源重组,常见于小RNA病毒与冠状病毒。重配是分节段病毒(如流感病毒)特有的机制,当两个不同亚型共同感染同一细胞时,子代病毒可获不同来源的基因节段,引发抗原转换。此外,病毒还可通过基因重复、缺失与插入获得新功能,如新冠病毒ORF8的缺失与免疫逃逸相关。
进化动力:选择、漂变与基因流编辑本段
自然选择是病毒适应性进化的主要动力。宿主免疫应答(中和抗体与T细胞)施加的定向选择驱动病毒抗原位点快速替换,形成抗原漂移;抗病毒药物压力则筛选出耐药突变株。遗传漂变在病毒传播瓶颈中尤为显著。传播瓶颈指少数病毒粒子从供体传播至受体,导致新宿主中病毒群体有效大小剧减,随机丢失部分变异。基因流通过宿主迁移与混合感染实现,促进不同地理来源病毒间的遗传交换。病毒进化常采用适应度景观模型描述,其中突变与选择在表型空间中的权衡决定演化路径。
病毒进化的主要模式编辑本段
抗原漂移指病毒表面抗原在免疫压力下发生点突变累积,使现有抗体有效性降低,是季节性流感与地方性冠状病毒的典型模式。抗原转变指分节段病毒发生基因重配,产生与既往毒株抗原性显著不同的新亚型,如1957年H2N2与1968年H3N2流感大流行。跨种传播是病毒在新宿主中建立感染的过程,通常需要病毒受体结合特性与复制能力的适应性突变,例如SARS-CoV-2的刺突蛋白在传播中积累突变以增强与人ACE2的亲和力。共进化与宿主适应涉及病毒与宿主免疫系统的长期博弈,如HIV-1在个体内与广谱中和抗体的协同演化。
病毒进化的研究方法编辑本段
系统发育分析通过构建进化树推断病毒起源、传播路径与分化时间,常结合分子钟模型估算演化速率以追溯疫情传播链。群体遗传学利用等位基因频率、连锁不平衡与有效群体大小等参数,量化病毒群体内的选择与漂变作用。深度测序能够检测低频变异,揭示准种组成与传播瓶颈。实验进化在受控条件下连续传代病毒,观察其适应性演化规律,如噬菌体与宿主共培养体系中的协同进化实验。此外,反向遗传学与定点突变用于验证特定突变对病毒适应性的影响。
病毒进化的医学与公共卫生意义编辑本段
病毒进化研究直接支撑疫苗更新策略。流感病毒抗原漂移要求每年评估流行株并调整疫苗组分;新冠病毒变异株的出现促使疫苗加强针与广谱疫苗研发。抗病毒耐药性的产生是病毒进化的典型后果,如HIV逆转录酶与蛋白酶抑制剂耐药突变的监测为联合抗逆转录病毒治疗提供依据。病毒起源与溯源借助进化分析评估人畜共患风险;毒力进化理论则探讨病毒传播性与致病性之间是否存在权衡,为防控策略提供参考。此外,病毒进化与宿主免疫系统的互作研究,有助于理解免疫逃逸机制与抗体依赖性增强现象。
挑战与前沿编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。