
紫外线视觉
紫外线视觉(Ultraviolet Vision)是生物感觉生物学中的一个重要概念,指生物体对波长范围约300-400纳米(紫外A波段,UVA)的电磁辐射的感知能力。这一能力广泛存在于动物界,其实现依赖于特化的光感受器细胞、特定类型的视蛋白以及眼内介质的紫外光透射特性。与人类视觉相比,紫外线视觉拓展了生物对光谱的感知范围,并在进化中适应了多种生态功能需求。
一、光感受器与视蛋白基础编辑本段
紫外线视觉的分子基础在于视蛋白(opsin)家族,这是一类属于G蛋白偶联受体超家族的跨膜蛋白,与发色团视黄醛共价结合形成视色素。不同视蛋白的氨基酸序列差异决定了其吸收光谱的峰值波长(λmax)。在脊椎动物中,视锥细胞视蛋白分为多个亚型,其中短波长敏感视蛋白SWS1(short-wavelength sensitive 1)在紫外到蓝光区域(355-440 nm)发生光谱调谐。SWS1的λmax受关键氨基酸位点(如第86位和第90位)的替换影响,这些位点的突变可导致紫外敏感向紫/蓝敏感转变。无脊椎动物(如昆虫)则利用不同视蛋白类型实现紫外感知,例如蜜蜂的紫外敏感视蛋白峰值为约340 nm。此外,某些昆虫的紫外感受器可能基于视紫红质(rhodopsin)的变体。
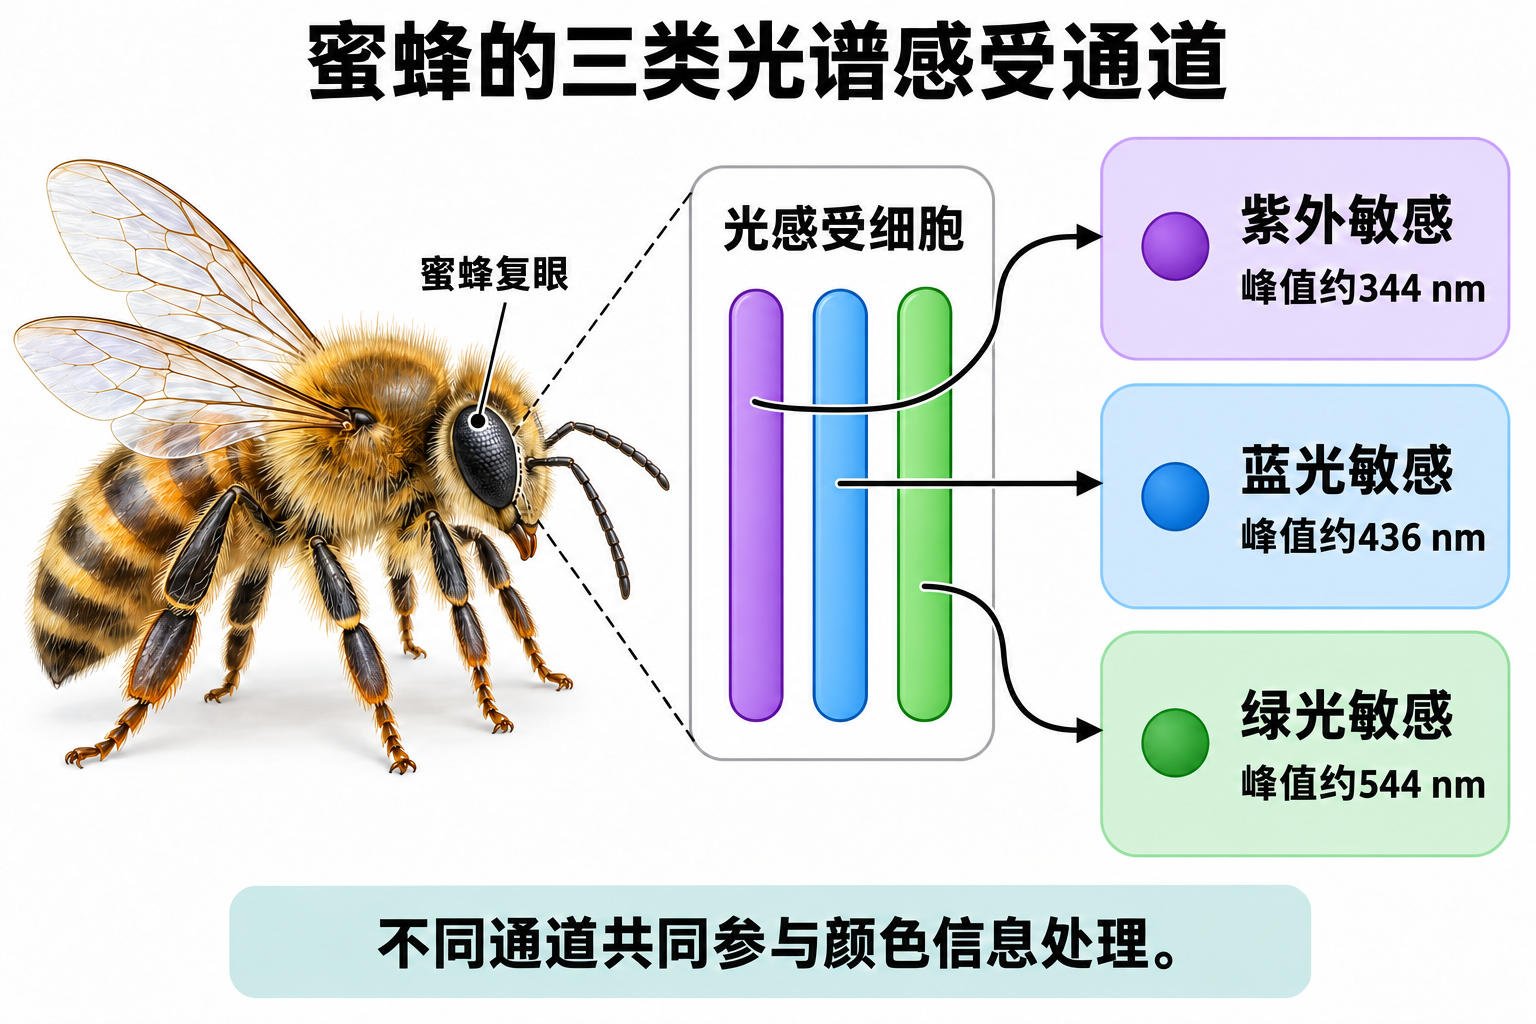 蜜蜂复眼中的光感受细胞形成紫外、蓝光和绿光敏感通道,峰值波长分别约为344、436和544 nm。黑色箭头表示不同通道的信号输出。
光转导过程遵循经典的G蛋白偶联级联反应:光子激活视色素后,启动磷酸二酯酶(PDE)级联,导致环鸟苷酸(cGMP)水平下降,进而关闭环核苷酸门控(CNG)离子通道,引起细胞超极化(脊椎动物)或去极化(无脊椎动物)。这一信号传导机制与可见光视觉共享,但紫外感受器的光谱特异性由视蛋白结构决定。
二、眼内介质的紫外透射与滤过编辑本段
紫外线视觉的实现不仅需要紫外敏感光感受器,还取决于眼内屈光介质(角膜、晶状体、玻璃体)对紫外光的透射特性。许多具有紫外线视觉的动物拥有高度透明的晶状体,允许UVA波段光到达视网膜。例如,某些鱼类和两栖类的晶状体可透射至300 nm左右。相反,人类晶状体富含晶状体蛋白(crystallins)和色氨酸代谢产物,能吸收大部分波长低于400 nm的紫外光,形成天然滤光屏障,保护视网膜免受光化学损伤。然而,在无晶状体眼(如白内障术后未植入人工晶体)患者中,紫外线可到达视网膜并被感知,表现为对紫外光的蓝白色知觉。
在昆虫中,复眼的小眼(ommatidia)结构同样依赖角膜和晶锥的紫外透射。部分蝴蝶的翅膀鳞片可反射紫外光,与复眼的紫外敏感性协同形成视觉信号。
三、脊椎动物中的紫外线视觉编辑本段
紫外线视觉在脊椎动物中呈斑块状分布。多数硬骨鱼类(如斑马鱼、罗非鱼)、两栖类(如蝾螈)、爬行类(如壁虎、蜥蜴)和鸟类(如鸣禽、鸽子)具有紫外线视觉。鸟类的SWS1视蛋白多调谐至紫外区(约355-380 nm),且其晶状体可透射紫外光。研究表明,鸟类利用紫外线视觉进行觅食(如检测含紫外反射的果实)和配偶选择(如羽毛的紫外反射特征)。部分啮齿类(如小鼠、大鼠)的SWS1视蛋白峰值在紫外区(约360 nm),但由于晶状体吸收,其视网膜实际接收的紫外光有限,行为学证据显示其可能具有残余紫外敏感性。
哺乳动物中紫外线视觉的缺失与进化过程中晶状体紫外滤过增强及SWS1基因突变有关。灵长类(包括人类)的SWS1视蛋白调谐至蓝光区(约420 nm),且晶状体高度吸收紫外光,因此正常人类不具备功能性紫外线视觉。
四、无脊椎动物的紫外线视觉编辑本段
昆虫是紫外线视觉研究的经典模型。蜜蜂(Apis mellifera)的复眼包含紫外敏感光感受器,峰值约340 nm,用于检测花蜜向导(nectar guides)和偏振光导航。果蝇(Drosophila melanogaster)的复眼含有两种紫外敏感视蛋白Rh3和Rh5,分别调谐至约345 nm和约437 nm,参与光趋性行为。蝴蝶(如Papilio)的紫外感受器在种间识别和求偶中发挥作用。此外,某些甲壳类(如螳螂虾)具有复杂的紫外敏感通道,但其光谱范围可能延伸至紫外B波段。
无脊椎动物的紫外感受器通常位于小眼的特定感光细胞(如R7细胞),并通过轴突投射至视叶的特定神经纤维层,形成紫外视觉的空间映射。
五、生态功能与行为意义编辑本段
紫外线视觉在生态交互中具有多重功能:
1. 觅食:许多花的花瓣具有紫外反射图案,引导传粉昆虫定位花蜜;鸟类利用紫外反射检测猎物(如田鼠的尿液标记)。
2. 配偶选择:鸟类羽毛的紫外反射可作为性选择信号;蝴蝶翅膀的紫外图案用于求偶展示。
4. 导航:昆虫利用天空偏振光(含紫外成分)进行方向定位。
六、人类紫外线视觉的边界编辑本段
正常人类视锥细胞的SWS1视蛋白峰值在约420 nm(蓝光区),晶状体吸收波长低于400 nm的光,因此人类无法感知紫外光。然而,在无晶状体眼个体中,紫外光可到达视网膜并被SWS1视锥细胞和视杆细胞感知,但知觉为蓝白色而非独立的紫外色。此外,部分研究报道在强紫外照射下,人类可能通过双光子吸收机制产生微弱紫外感知,但其生理意义尚存争议。
七、研究方法与进展编辑本段
紫外线视觉的研究方法包括:电生理记录(如视网膜电图ERG、单细胞记录)测定光感受器光谱敏感性;行为学实验(如色光选择、趋光性测试)评估紫外感知阈值;分子生物学技术(如视蛋白基因克隆、定点突变)解析光谱调谐机制;以及光学建模分析眼内介质透射特性。近年来,基因编辑技术(如CRISPR/Cas9)为构建紫外视觉动物模型提供了新工具,例如通过敲除晶状体紫外吸收蛋白基因改变紫外透射特性。
八、进化与比较生物学视角编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。