
表皮分化
引言编辑本段
表皮是皮肤的最外层,由复层扁平上皮构成,其核心功能是形成物理屏障,防止水分丢失和外界有害物质侵入。表皮分化(epidermal differentiation)又称角质形成细胞终末分化,是指位于基底层的有增殖能力的角质形成细胞,在退出细胞周期后,经历棘层、颗粒层,最终到达角质层并发生程序性细胞死亡的全过程。这一过程受到精密而复杂的时空调控,涉及基因表达重编程、细胞骨架重塑、细胞间连接动态变化以及脂质代谢重排。表皮分化异常可导致多种皮肤病,包括银屑病、特应性皮炎、寻常型鱼鳞病和皮肤鳞状细胞癌等。
表皮的层次结构编辑本段
正常人类表皮从内向外分为四层:基底层(stratum basale)、棘层(stratum spinosum)、颗粒层(stratum granulosum)和角质层(stratum corneum)。基底层由单层柱状角质形成细胞组成,通过半桥粒锚定于基底膜,具有干细胞特性,表达角蛋白5(K5)和角蛋白14(K14)。棘层细胞体积较大,呈多角形,通过桥粒相互连接,表达角蛋白1(K1)和角蛋白10(K10)。颗粒层细胞含有透明角质颗粒(keratohyalin granules),富含丝聚蛋白原(profilaggrin),并开始表达兜甲蛋白(loricrin)和内披蛋白(involucrin)。角质层由扁平、无核的角质细胞(corneocytes)构成,被多层脂质基质包绕,形成“砖墙结构”,其中角质细胞为“砖”,脂质为“灰浆”。
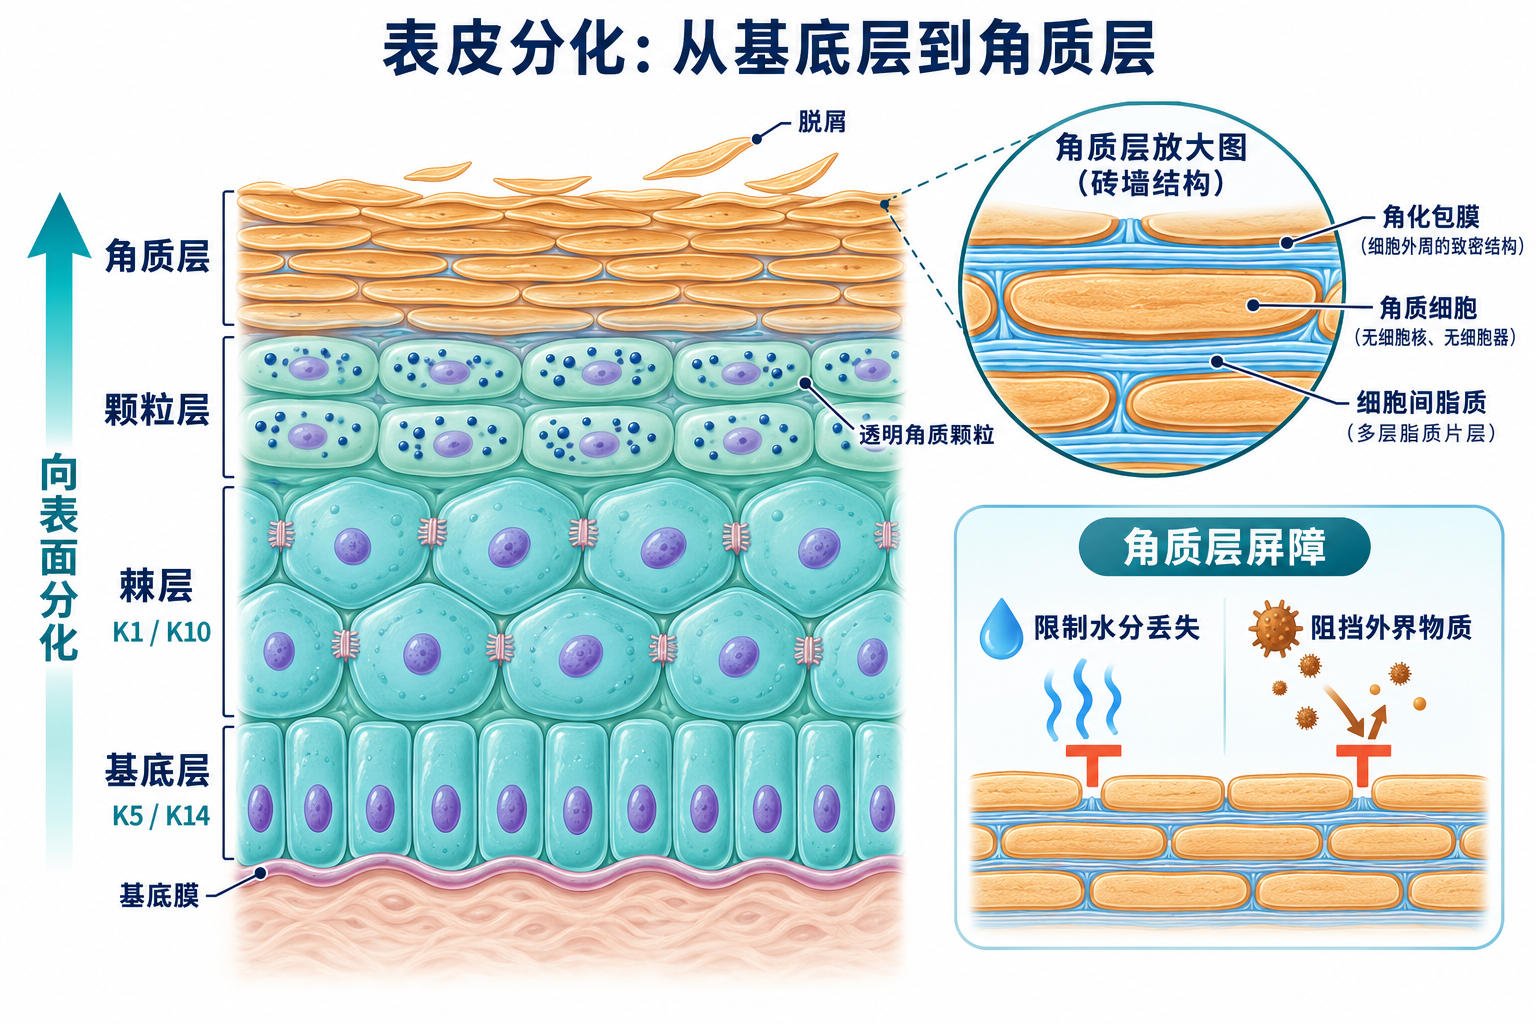 表皮分化示意图:角质形成细胞从基底层向表面分化,经棘层和颗粒层成为扁平、无核的角质细胞。角质细胞与细胞间脂质共同构成角质层屏障。点击查看原图。
分子调控机制编辑本段
转录因子网络
p63是表皮发育和分化的主调控因子,其缺失导致表皮无法形成。Notch信号通路通过抑制基底层细胞增殖并促进终末分化,在分化起始中起关键作用。激活蛋白-1(AP-1)家族成员如c-Jun和JunB参与调控分化相关基因的表达。Krüppel样因子4(KLF4)在颗粒层中高表达,促进丝聚蛋白和兜甲蛋白基因的转录。此外,维生素D受体(VDR)和过氧化物酶体增殖物激活受体(PPAR)也参与调控表皮分化与脂质合成。
钙离子梯度与信号通路
表皮内存在显著的钙离子浓度梯度,基底层钙浓度较低,颗粒层最高。钙离子通过激活钙调蛋白和蛋白激酶C,促进角质形成细胞分化。细胞外钙离子浓度升高可诱导角质形成细胞分化标志物如内披蛋白和丝聚蛋白的表达。此外,Wnt/β-catenin、Hedgehog和TGF-β信号通路也参与调控表皮分化的不同阶段。
结构蛋白与角化包膜
分化过程中,角质形成细胞合成一系列特异性结构蛋白。丝聚蛋白原在颗粒层中合成,去磷酸化后经蛋白酶切割释放丝聚蛋白单体,后者聚集角蛋白丝并促进其降解。兜甲蛋白和内披蛋白通过转谷氨酰胺酶1(TGM1)交联,形成不溶性的角化包膜(cornified envelope),替代细胞膜。此外,小分子富脯氨酸蛋白(SPRRs)和晚期角化包膜蛋白(LEPs)也参与角化包膜的形成。角质层脂质主要由神经酰胺、胆固醇和游离脂肪酸组成,由板层小体分泌,经脂质加工酶修饰后形成屏障。
表观遗传与微小RNA调控
DNA甲基化、组蛋白修饰和微小RNA(miRNA)在表皮分化中发挥重要调控作用。例如,miR-203通过抑制p63表达促进分化,而miR-125b则抑制分化。组蛋白去乙酰化酶(HDAC)抑制剂可诱导分化相关基因表达。表观遗传调控的异常与银屑病和皮肤肿瘤的发生相关。
分化过程的阶段特征编辑本段
基底层至棘层过渡:细胞退出细胞周期,K5/K14表达下调,K1/K10表达上调,桥粒数量增加,细胞间黏附增强。 棘层至颗粒层过渡:细胞合成透明角质颗粒,表达丝聚蛋白原、兜甲蛋白和内披蛋白,板层小体分泌脂质。 颗粒层至角质层过渡:细胞器降解,DNA断裂,角化包膜形成,脂质重排,最终形成扁平角质细胞。这一过程伴随细胞体积增大、扁平化和水分丢失。
生理功能与临床意义编辑本段
表皮分化形成的角质层是机体抵御外界环境的第一道防线,其功能包括:机械保护、渗透屏障、抗菌防御、紫外线防护和免疫监视。表皮分化异常与多种疾病相关: 银屑病:分化加速,角化不全,K16异常表达。 特应性皮炎:丝聚蛋白基因(FLG)突变导致屏障缺陷。 鱼鳞病:TGM1、FLG或ABCA12等基因突变引起角化异常。 皮肤鳞状细胞癌:分化标志物表达丢失,p63异常。 衰老:表皮变薄,分化减慢,屏障功能下降。
研究方法与模型编辑本段
研究表皮分化的常用方法包括:体外角质形成细胞培养(如HaCaT细胞系)、器官型培养模型、基因敲除小鼠模型(如p63-/-、TGM1-/-)、转录组学和蛋白质组学分析、以及三维皮肤重建模型。近年来,单细胞RNA测序和空间转录组学为了解表皮分化的异质性和时空动态提供了新视角。
研究前沿与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。