
脊椎动物起源
引言:脊椎动物起源的科学意义编辑本段
脊椎动物(Vertebrata)是脊索动物门(Chordata)中最为繁盛的一个亚门,包含了鱼类、两栖类、爬行类、鸟类和哺乳类等约七万种生物。脊椎动物的起源是生命演化史上最具革命性的事件之一,它不仅标志着从无脊椎动物到有脊椎动物的形态飞跃,更牵涉到神经系统、骨骼系统、感觉器官和复杂生理功能的重大创新。这一演化事件发生在距今约5.2亿年前的寒武纪早期,与著名的“寒武纪大爆发”密切相关。然而,由于早期脊椎动物化石的稀少和保存状态的不完整性,脊椎动物起源的具体过程、时间节点和驱动机制长期以来是古生物学和演化发育生物学领域争论的焦点。
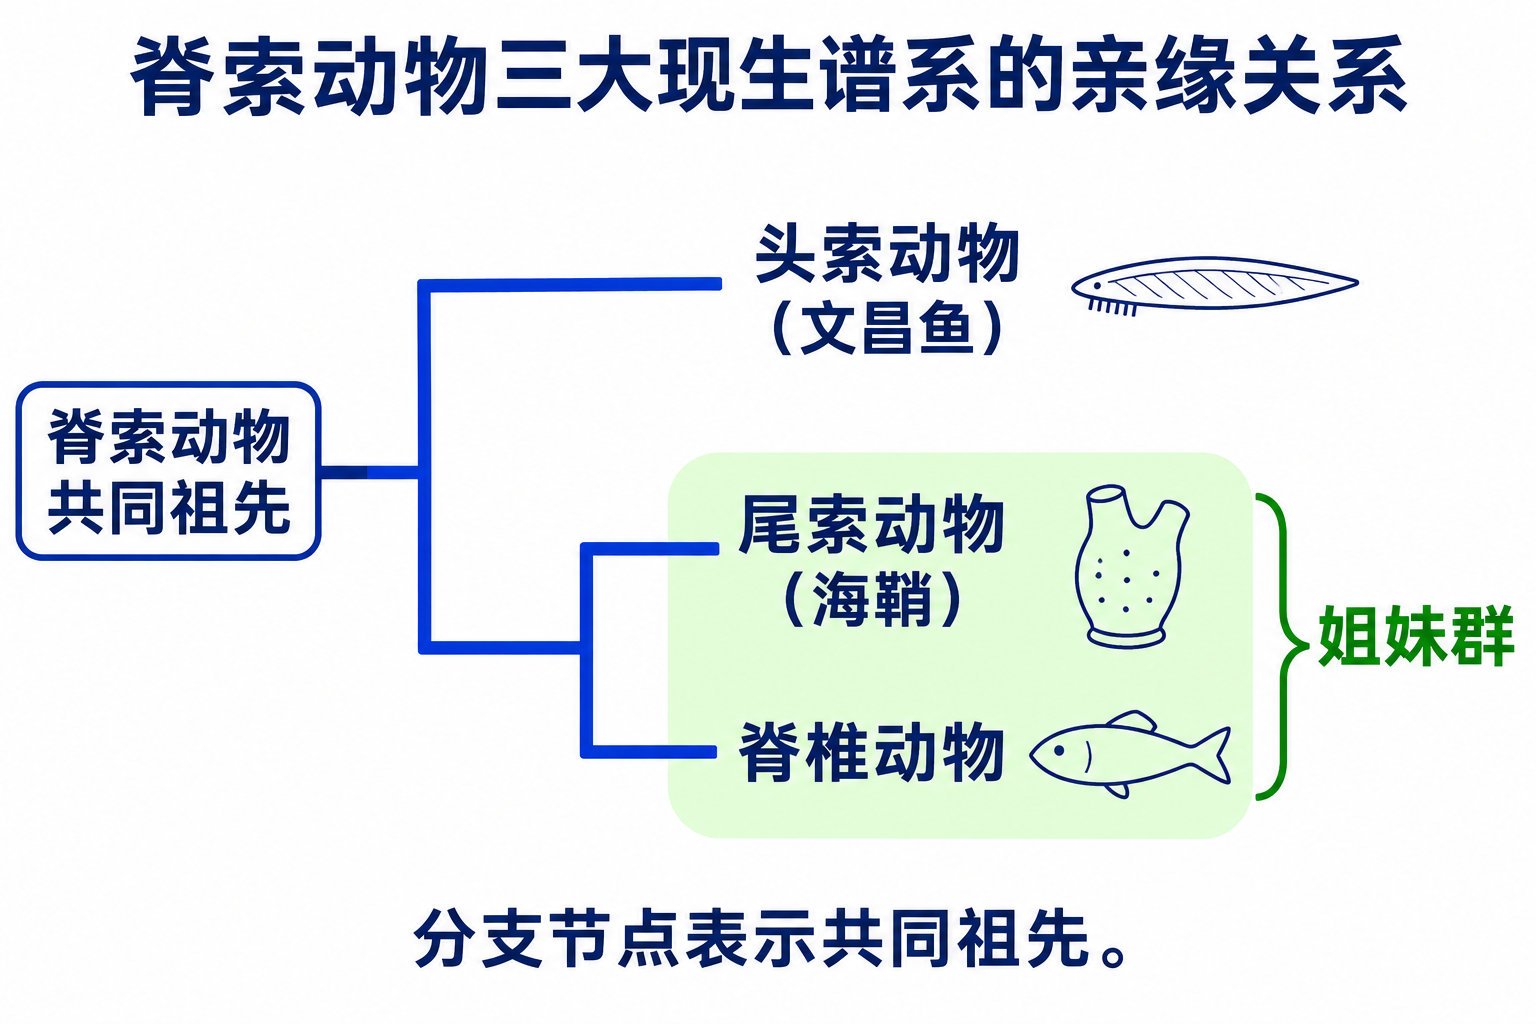 头索动物在较早分支处分出,尾索动物与脊椎动物共享较近的共同祖先;分支节点表示共同祖先。
脊索动物门与脊椎动物的亲缘关系编辑本段
脊椎动物的起源研究必须置于脊索动物门的系统发生框架内。脊索动物门包括三个亚门:头索动物亚门(Cephalochordata,如文昌鱼)、尾索动物亚门(Urochordata/Tunicata,如海鞘)和脊椎动物亚门(Vertebrata)。传统上,头索动物被认为是脊椎动物的姐妹群,因为其具有贯穿全身的脊索、背神经管和分节的肌节,这些特征与脊椎动物更为相似。然而,分子系统发生学研究揭示,尾索动物(海鞘)实际上与脊椎动物的亲缘关系更近,这一结论得到了线粒体基因组和核基因数据的支持。因此,脊椎动物的最近共同祖先可能是一个具有尾索动物幼虫阶段特征的生物,其幼体自由游泳并具有脊索和背神经管,而成体则固着生活。这种“幼态持续”或“幼体演化”的假说为理解脊椎动物起源提供了重要线索。
头索动物如文昌鱼(Branchiostoma lanceolatum)作为“活化石”模型,为研究脊椎动物起源前的祖先状态提供了关键信息。文昌鱼具有典型的脊索动物结构,包括脊索、背神经管、咽鳃裂和分节肌节,但缺乏真正的头部、成对的感官器官和神经嵴衍生结构。通过与脊椎动物比较,可以推断出脊椎动物特有性状的起源。例如,文昌鱼的基因组保留了脊椎动物基因组的原始特征,其神经嵴相关基因(如Snail、FoxD和SoxE)的表达模式提示了神经嵴的演化前体。此外,尾索动物如玻璃海鞘(Ciona intestinalis)的基因组研究揭示了脊索动物祖先的基因组成,并表明脊椎动物演化过程中发生了大规模基因复制事件,这些复制为脊椎动物的复杂化提供了遗传基础。
化石记录:寒武纪早期的关键证据编辑本段
脊椎动物起源的化石证据主要来自中国云南澄江生物群和昆明附近的筇竹寺组地层,这些早寒武世(约5.18亿年前)的化石宝库保存了精美的软躯体结构,为早期脊椎动物的形态演化提供了直接证据。1999年,舒德干等人报道了昆明鱼(Myllokunmingia fengjiaoa)和海口鱼(Haikouichthys ercaicunensis),这些最早期的脊椎动物化石显示出明确的脊索动物特征,如脊索、肌节、鳃囊和可能的头部结构,但缺乏硬骨化的骨骼。昆明鱼和海口鱼的发现将脊椎动物化石记录向前推进到了寒武纪早期,并支持了脊椎动物在寒武纪爆发前就已经出现的假说。
稍晚的化石如钟健鱼(Zhongjianichthys rostratus)和后口鱼(Metaspriggina walcotti)(来自加拿大伯吉斯页岩)进一步展示了早期脊椎动物的形态多样性。这些化石表明,最早的脊椎动物可能具有类似现生七鳃鳗的特征,包括无颌的吸盘状口、成对的鳃囊和分节的肌节,但缺乏成对的鳍和高度硬化的骨骼。然而,化石的稀少性和解释的困难导致争议不断:例如,某些被认为是脊椎动物的化石后来被重新解释为其他脊索动物甚至无脊椎动物。此外,分子钟分析估计脊椎动物的起源时间可能早于寒武纪,在埃迪卡拉纪(约6亿年前)就已经分化,这与化石记录存在一定的矛盾,暗示了化石保存的不完整性和演化速率的异质性。
发育遗传学与脊椎动物新性状的起源编辑本段
脊椎动物演化过程中出现了一系列独特的形态创新,这些创新是理解脊椎动物起源的关键。其中最显著的包括神经嵴(neural crest)、颅骨与颌骨、成对感官器官(如眼和耳)以及成对附肢。这些结构并非凭空出现,而是通过基因调控网络的重新布线实现的。发育遗传学研究揭示了这些创新的分子基础。例如,神经嵴细胞是脊椎动物胚胎发育中的一种迁移性多能干细胞,它分化成颅面骨骼、外周神经系统、色素细胞等。神经嵴的起源被认为是脊椎动物的关键创新,其演化前体可能存在于头索动物中,通过基因复制和调控网络的重组而获得。
与此相关的是基因复制事件。脊椎动物演化早期发生了两轮全基因组复制(2R假说),产生了大量旁系同源基因,这些基因的亚功能化或新功能化为脊椎动物的复杂性提供了材料。例如,Hox基因簇的扩增与脊椎动物体轴的分化有关,而Dlx基因家族在颅神经嵴和颌弓的发育中起关键作用。此外,FoxD3、Sox10和Snail等基因在神经嵴诱导和迁移中的保守作用,支持了从无脊椎脊索动物到脊椎动物神经嵴调控网络的渐进演化模型。通过比较文昌鱼和海鞘的基因组,发现它们具有神经嵴基因的同源基因,但这些基因并不形成迁移性细胞。因此,神经嵴的起源可能涉及基因表达的重组和细胞行为的变化,而非新基因的从头产生。
分子系统发生学与时间框架编辑本段
分子系统发生学通过比较大量基因序列,为脊椎动物起源提供了独立于化石的证据。分子钟分析通常使用保守的核基因或线粒体基因,校准点来自化石记录。基于这些分析,脊椎动物与其无脊椎脊索动物姐妹群的分化时间估计在埃迪卡拉纪晚期到寒武纪早期(约6-5.5亿年前)。这一时间框架与化石记录中的最早脊椎动物(约5.2亿年前)大致吻合,但暗示了存在一个漫长的“幽灵谱系”时期。近年的研究通过分析微小RNAs和基因顺序,进一步支持了头索动物在脊索动物门中的基部分支位置,从而将脊椎动物和尾索动物作为姐妹群。然而,分子钟估计的准确性依赖于校准点的选择和模型假设,因此仍然存在不确定性。
争议与未来方向编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。