
感受器电位
概念界定与基本特征编辑本段
感受器电位(Receptor Potential)是指感觉感受器在受到适宜刺激时,其细胞膜上产生的局部、分级式电位变化。它不同于动作电位,不具有“全或无”特性,其幅度随刺激强度增加而增大,并可在感受器膜上以电紧张方式短距离扩布。感受器电位通常产生于感觉神经末梢或特化感受细胞的顶端膜,例如环层小体的无髓末梢、毛细胞的纤毛束或嗅感觉神经元的树突末梢。在进化上,感受器电位是感觉系统实现信号换能(transduction)的第一步,将光、声、机械、化学、温度等物理或化学刺激转化为电信号。
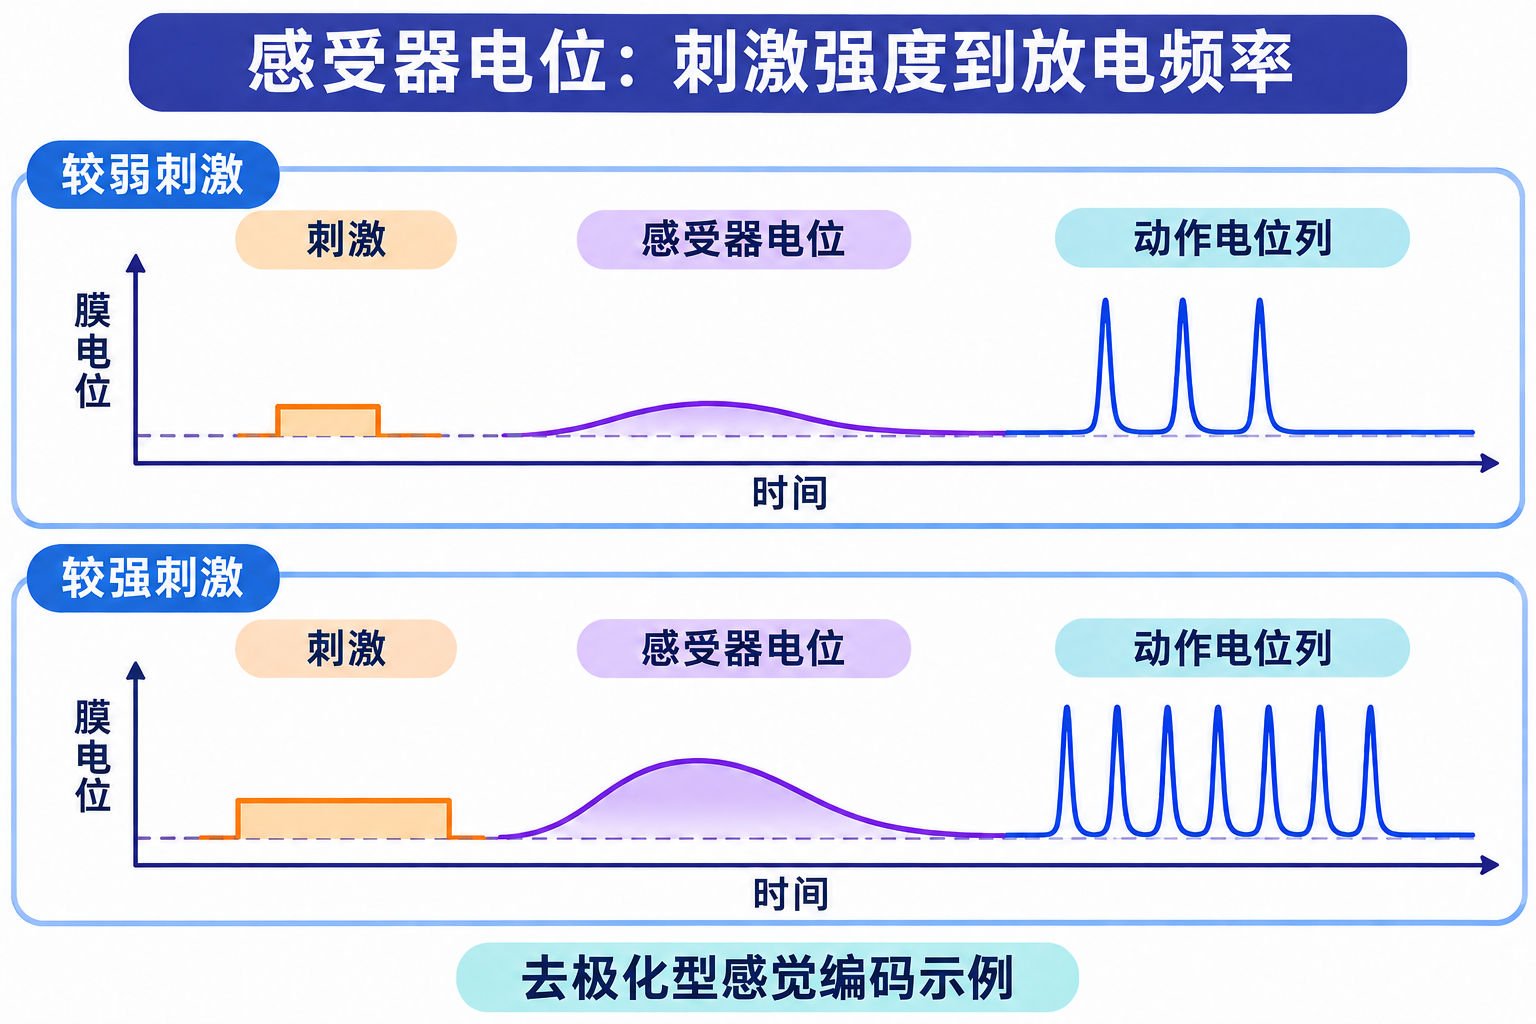 较强刺激产生较大的感受器电位,并在相同时间窗内引发更密集、幅度相近的动作电位,展示去极化型感受器的强度编码。
产生机制与离子基础编辑本段
感受器电位的产生依赖于感受器膜上特异性离子通道的开放。根据刺激类型的不同,这些通道可分为机械门控通道(如Piezo2、TMC1/2)、化学门控通道(如嗅觉受体通道、味觉受体通道)、温度敏感型TRP通道(如TRPV1、TRPM8)以及光敏感通道(如视紫红质信号通路调控的CNG通道)。当通道开放时,Na⁺、Ca²⁺等阳离子内流(或Cl⁻外流)导致膜去极化,形成感受器电位。在脊椎动物毛细胞中,机械刺激使纤毛束偏转,牵拉尖端连接(tip link),开放机械门控通道,K⁺内流引起去极化。而在无脊椎动物光感受器中,光刺激则通过G蛋白偶联的磷脂酶C通路激活TRP通道,产生去极化的感受器电位。感受器电位的幅度取决于通道开放数量与单通道电导,并受膜电位、离子浓度梯度及细胞内信号转导的调制。
感受器电位与动作电位的编码关系编辑本段
在大多数感觉通路中,感受器电位需经编码转化为动作电位才能进行长距离传导。编码发生在感觉神经元的第一级轴突起始段(initial segment)或郎飞结处。当感受器电位以电紧张方式扩布至该区域并使膜去极化达到阈值时,电压门控Na⁺通道开放,触发动作电位。刺激强度通过改变感受器电位的幅度,进而调节动作电位的频率来编码:刺激越强,感受器电位越大,动作电位频率越高。这种频率编码使感觉系统能够表征刺激强度的动态范围。此外,部分感受器(如视网膜感光细胞)不直接产生动作电位,而是通过感受器电位调节突触递质释放,将信号传递给双极细胞,再经二级神经元编码为动作电位。
适应现象与感受器电位的时程变化编辑本段
感受器电位具有适应特性,即持续恒定刺激下其幅度逐渐减小。根据适应速度,感受器可分为快适应(位相性)和慢适应(紧张性)感受器。快适应感受器(如环层小体)对刺激变化敏感,其感受器电位迅速衰减,有利于检测振动或运动;慢适应感受器(如颈动脉窦压力感受器)则维持持续的电位水平,参与稳态调节。适应机制涉及通道失活、细胞内Ca²⁺积累、机械耦合结构的粘弹性变化以及辅助细胞的作用。例如,毛细胞适应由肌球蛋白马达(myosin Ic)沿纤毛F-肌动蛋白滑动、调节尖端连接张力所介导,从而改变机械门控通道的开放概率。
在不同感觉系统中的作用编辑本段
在视觉系统中,光刺激视紫红质激活G蛋白转导蛋白(transducin),激活磷酸二酯酶,降低cGMP浓度,关闭CNG通道,导致外段膜超极化——这是一种抑制性感受器电位,其幅度与光强成反比。在听觉系统中,声波振动经中耳传至耳蜗,引起基底膜振动,使毛细胞纤毛束偏转,开放机械门控通道,产生去极化感受器电位,进而增加传入神经纤维的放电频率。在嗅觉系统中,气味分子与嗅感觉神经元纤毛上的 odorant 受体结合,经Golf蛋白激活腺苷酸环化酶,升高cAMP,开放CNG通道,引起去极化感受器电位。在躯体感觉中,机械刺激经Piezo2通道将机械力转化为阳离子内流,产生感受器电位,编码触压觉。各感觉系统的感受器电位在时程、幅度和离子机制上虽有差异,但均遵循分级编码与电紧张扩布的基本规律。
研究意义与临床关联编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。