
逆转录假基因
定义与基本概念编辑本段
逆转录假基因(Retrocopy,亦称processed pseudogene、processed copy)是基因组中一类特殊的序列,其来源不是DNA复制错误或基因重复,而是以成熟mRNA为模板,经逆转录酶(reverse transcriptase)催化生成互补DNA(cDNA),再由整合酶或转座酶介导插入基因组新位点而形成的基因拷贝。1977年,Jacq等人在非洲爪蟾中首次描述了这种缺乏内含子的基因拷贝,随后在哺乳动物基因组中被大量发现。与经典的“未加工假基因”(unprocessed pseudogene,来源于基因组DNA复制后发生功能失活)不同,逆转录假基因具有几个鲜明的结构特征:其一,缺少原始基因的启动子区及内含子,序列与成熟mRNA完全对应;其二,5'端常发生截断,3'端带有poly(A)尾巴(poly(A) tail);其三,两侧往往有短正向重复序列(target site duplication, TSD),这是整合酶介导插入的痕迹;其四,由于逆转录酶缺乏校对功能,其序列常带有较多随机突变,多数情况下终止密码子提前出现或阅读框被破坏,因而不能编码有功能的蛋白质。
形成机制编辑本段
逆转录假基因的形成依赖于细胞内的逆转录转座(retrotransposition)过程,其分子步骤大致如下:首先,细胞内源逆转座子(如LINE-1,即L1)编码的ORF2蛋白具有逆转录酶与内切酶活性,能够识别并切割基因组DNA。其次,细胞中正常存在的mRNA被L1逆转录酶在细胞质中逆转录为cDNA,形成mRNA-cDNA杂合中间体。然后,该cDNA被导入细胞核,并借助L1内切酶产生的切口插入基因组,最终通过宿主DNA修复机制完成整合。整个过程被称为“逆转录转座”,属于“复制-粘贴”式转座。由于这一过程主要发生在生殖细胞或早期胚胎细胞中,插入事件才可能被遗传给后代。值得注意的是,L1元件本身编码的蛋白在多数体细胞中表达极低,这限制了逆转录转座的发生频率,但在肿瘤细胞和胚胎干细胞中其活性可显著升高,因此逆转录假基因在癌症基因组中常呈现异常积累。
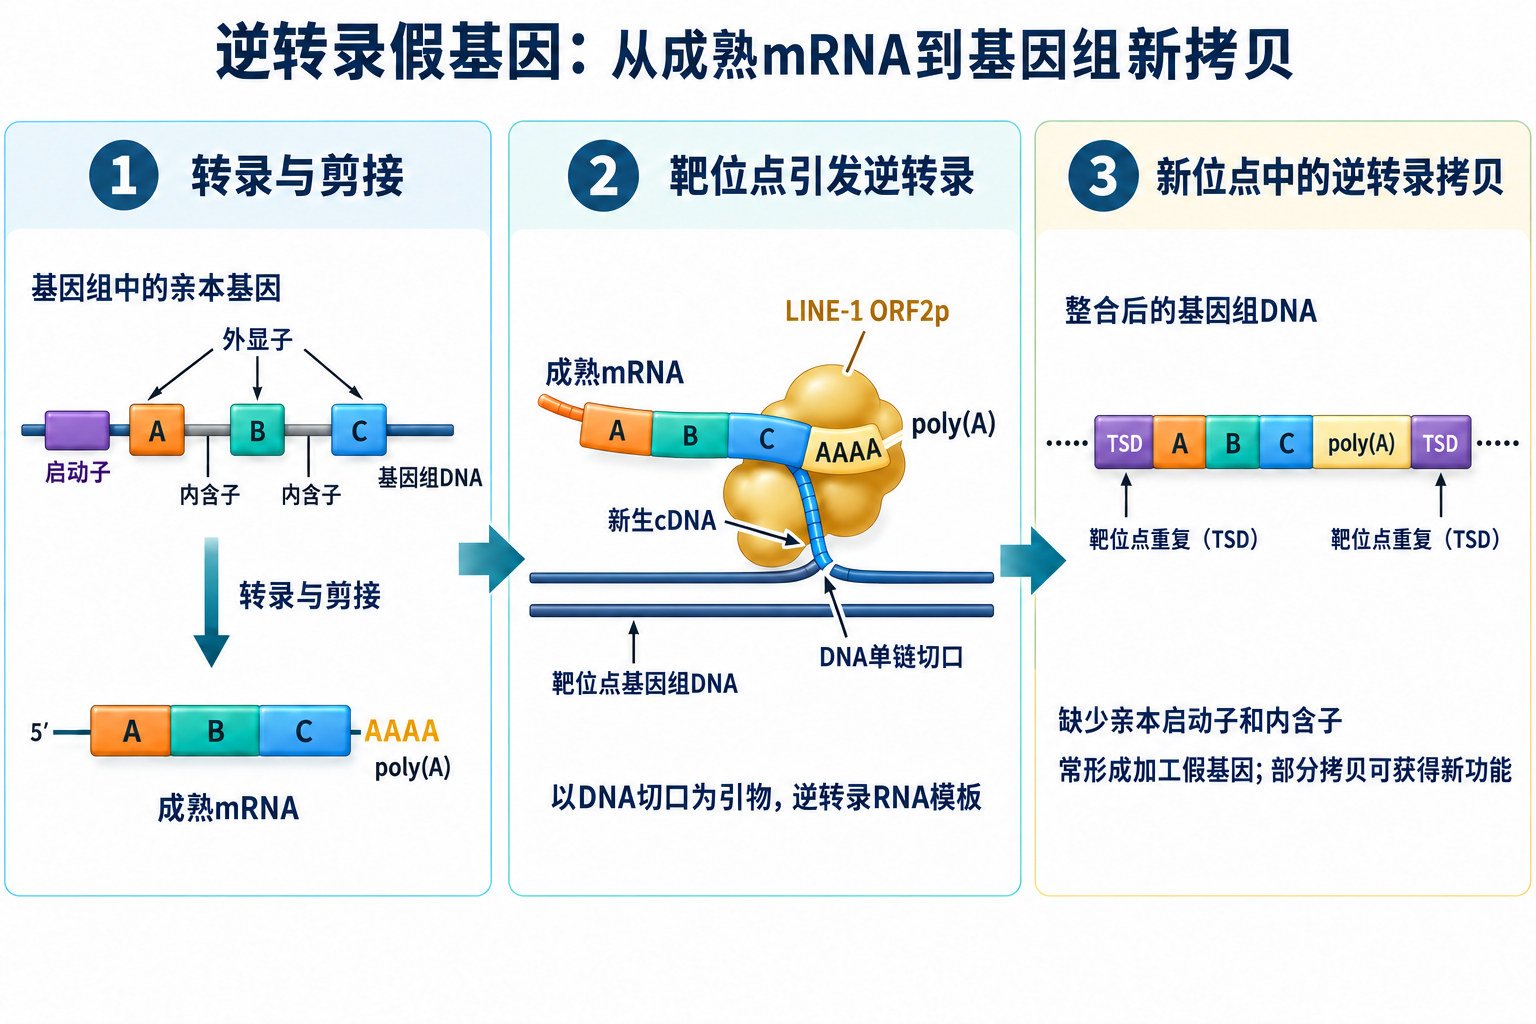 逆转录拷贝形成示意图:成熟mRNA经剪接后不含内含子,可借助LINE-1蛋白在基因组靶位点进行逆转录。新拷贝通常缺少亲本启动子和内含子,可带有poly(A)序列及两侧的靶位点重复;其中缺乏原有蛋白编码功能的拷贝称为加工假基因。点击查看原图。
结构特征与识别方法编辑本段
在生物信息学分析中,逆转录假基因的识别主要基于以下特征:与亲本基因(parental gene)高序列相似性(通常>70%),但缺乏内含子;序列长度大致等于成熟mRNA,且3'端有poly(A)尾;两侧有短正向重复(TSD);通常位于基因组的基因间区或内含子中。常用的鉴定工具包括PseudoPipe、RetroFinder和UCSC Genome Browser中的Retroposed Genes轨道等。基于这些方法,科学家已在人类基因组中鉴定出约8000–10000个逆转录假基因,小鼠基因组中亦有数千个,是哺乳动物基因组的重要组成部分。
功能与进化意义编辑本段
长期以来,逆转录假基因被视为“垃圾DNA”或“死基因”,但现在人们已认识到,部分逆转录假基因在进化中获得了新功能。首先,某些逆转录假基因可通过“外显子捕获”(exon shuffling)与邻近基因融合,形成新的嵌合基因,从而产生新的蛋白质结构域组合。例如,人类基因PMCHL1和PMCHL2就是由逆转录转座事件产生的嵌合基因。其次,逆转录假基因可转录成非编码RNA,作为竞争性内源RNA(ceRNA)吸附microRNA,从而间接调节亲本基因或其他基因的表达。第三,部分逆转录假基因可产生小干扰RNA(siRNA)或PIWI相互作用RNA(piRNA),参与基因沉默和基因组防御。此外,在极少数情况下,逆转录假基因可重新获得启动子并编码截短但仍具功能的蛋白质。例如,人类基因NANOGP8是一个逆转录假基因,其在多种肿瘤中表达,并具有类似NANOG的促癌功能。在进化层面,逆转录假基因是基因家族扩张和功能创新的重要“原材料”,其插入还可造成亲本基因的破坏或调控元件重构,从而驱动物种间表型差异。
与疾病的关系编辑本段
逆转录假基因的异常活动与多种疾病相关。在肿瘤中,低甲基化可激活逆转录假基因的转录,产生异常RNA或蛋白,促进细胞增殖和转移。例如,PTENP1是PTEN的逆转录假基因,它可通过ceRNA机制调节PTEN表达,其表达下调与多种癌症的不良预后相关。在遗传病中,逆转录假基因插入可破坏重要基因,导致疾病发生。例如,L1介导的逆转录转座可导致血友病A、杜氏肌营养不良等。此外,在神经退行性疾病中,LINE-1的异常激活和逆转录假基因积累与衰老及神经炎症有关。因此,逆转录假基因不仅是基因组进化的“化石”,也是疾病发生的重要参与者。
研究展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。