
基因组结构变异
定义与分类编辑本段
基因组结构变异(Genomic Structural Variation, SV)是指基因组中长度大于50 bp的DNA序列改变,区别于单核苷酸变异(SNV)和小片段插入缺失(indel)。根据变异的类型和方向,结构变异可分为以下几大类:缺失(deletion),即基因组片段丢失;重复(duplication),即片段拷贝数增加;倒位(inversion),即片段方向反转;易位(translocation),即片段在不同染色体或同一染色体不同位置间转移;插入(insertion),即外源或新合成序列插入基因组。此外,拷贝数变异(CNV)通常指长度大于1 kb的缺失和重复,但广义上也可涵盖更小片段。按变异是否平衡,可分为平衡型(倒位、易位)和非平衡型(缺失、重复、插入)。
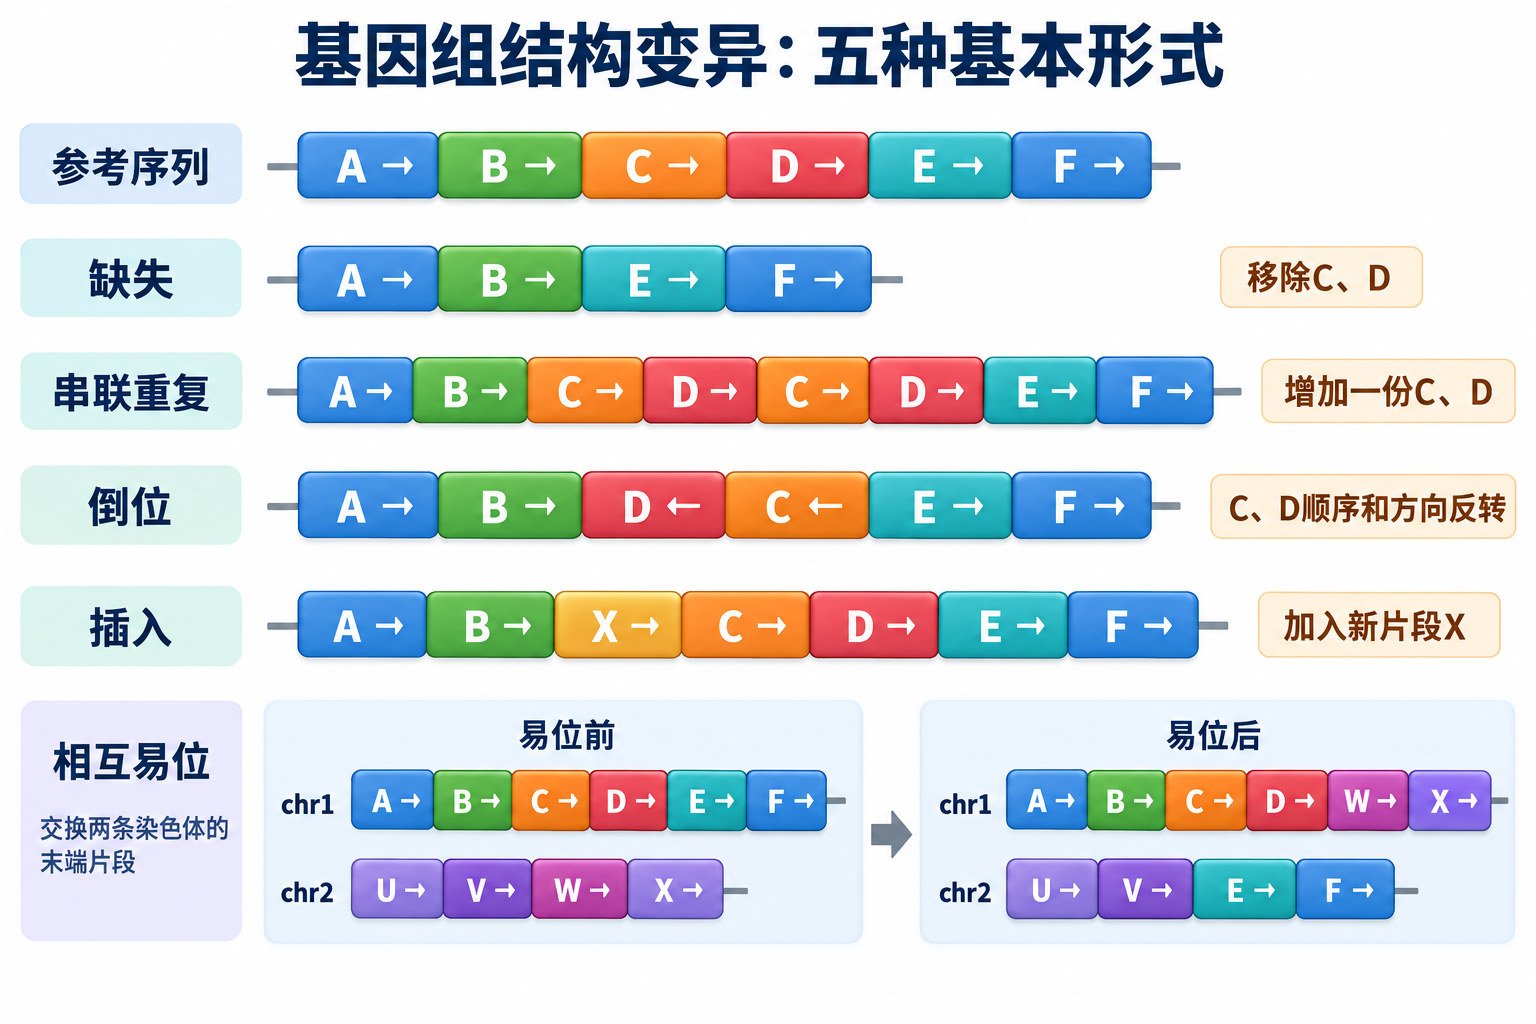 基因组结构变异示意图:缺失移除片段,重复增加拷贝,倒位同时改变片段顺序和方向,插入加入新片段,相互易位交换两条染色体的片段。字母和箭头分别表示片段身份与方向。点击查看原图。
形成机制编辑本段
结构变异的产生涉及多种分子机制。最常见的机制包括非等位同源重组(NAHR),由低拷贝重复序列(LCR)或节段性重复介导,导致复发性微缺失和微重复,如22q11.2缺失综合征。其次是非同源末端连接(NHEJ)和微同源介导的断裂诱导复制(MMBIR/FoSTeS),常产生非复发性变异。此外,复制叉停滞和模板转换、转座子活动以及染色体碎裂(chromothripsis)等过程也可导致复杂结构变异。染色体碎裂指一条或少数染色体在单次事件中发生数十至数百次重排,常见于癌症基因组。
检测技术编辑本段
结构变异的检测技术经历了从细胞遗传学到分子遗传学的演进。传统核型分析可检测大于5-10 Mb的变异,分辨率低但能观察全基因组。荧光原位杂交(FISH)和微阵列比较基因组杂交(aCGH)将分辨率提升至kb级别,但仅能检测非平衡变异。二代测序(NGS)通过配对末端映射、分裂读段和读段深度分析可检测全基因组结构变异,但受限于短读长,对重复区域和平衡型变异检测能力有限。近年来,长读长测序(如PacBio HiFi、Oxford Nanopore)和光学基因组图谱(OGM)显著提高了结构变异的检出率和断点精度。单细胞测序技术则揭示了细胞群体中结构变异的异质性。Bionano和10x Genomics Linked-Reads等也提供了补充手段。
生物学意义与功能影响编辑本段
结构变异对基因组功能的影响是多层次的。首先,它可直接改变基因剂量,如缺失导致单倍剂量不足,重复可能引起三倍剂量效应。其次,结构变异可破坏基因编码区或调控元件,产生融合基因,如慢性粒细胞白血病中的BCR-ABL1融合。第三,倒位和易位可改变染色质拓扑结构域(TAD)边界,影响增强子-启动子互作,导致原癌基因异常激活。第四,结构变异是基因组进化的主要驱动力之一,通过基因复制和新功能化促进物种适应性演化。据估计,人类基因组中约4.8%-9.5%的序列为结构变异区域,个体间结构变异差异可达数千个。
与疾病的关系编辑本段
结构变异与多种疾病密切相关。在神经发育疾病中,16p11.2缺失/重复、22q11.2缺失、15q11-q13重复等是自闭症谱系障碍、精神分裂症和智力障碍的高风险因素。在罕见病中,DMD基因大片段缺失导致杜氏肌营养不良,SMN1缺失导致脊髓性肌萎缩症。在癌症中,结构变异驱动肿瘤发生,如MYC扩增、PTEN缺失、ALK融合等。此外,结构变异还参与自身免疫病、代谢疾病和感染性疾病的易感性。临床上,结构变异检测已成为产前诊断、遗传病筛查和肿瘤精准医疗的重要组成部分。
研究挑战与展望编辑本段
附件列表
词条内容仅供参考,如果您需要解决具体问题
(尤其在法律、医学等领域),建议您咨询相关领域专业人士。